Textos de familias y subfamilias (español)
Aquí se reúne el texto en español de las familias y subfamilias, con sus ilustraciones. Esos mismos textos aparecen también en cada página de familia y subfamilia de la edición española; las listas de especies, en esas mismas páginas, y el índice en el índice taxonómico.
- MASTOTERMITIDAE 澳白蚁科
- ARCHOTERMOPSIDAE 古白蚁科
- HODOTERMITIDAE 草白蚁科
- HODOTERMOPSIDAE 原白蚁科
- STOLOTERMITIDAE 胄白蚁科
- KALOTERMITIDAE 木白蚁科
- PSAMMOTERMITIDAE 沙白蚁科
- RHINOTERMITIDAE 鼻白蚁科
- SERRITERMITIDAE 齿白蚁科
- STYLOTERMITIDAE 杆白蚁科
- TERMITOGETONIDAE 寡脉白蚁科
- HETEROTERMITIDAE 异白蚁科
- TERMITIDAE 白蚁科
MASTOTERMITIDAE 澳白蚁科
La familia Mastotermitidae fue establecida por Desneux en 1904 (Desneux, 1904: 284) (1). El género tipo es Mastotermes Froggatt, 1897, con la especie tipo Mastotermes darwiniensis Froggatt, 1897 fijada por designación original y monotipia. El nombre de la familia se forma a partir del nombre del género tipo más el sufijo de nivel de familia -idae; Mastotermes se interpreta generalmente como una combinación del griego mastos ('protuberancia semejante a un pecho') y termes, en referencia a las estructuras semejantes a papilas del abdomen de la reina. En esta familia los soldados y las obreras son semejantes en apariencia y están poco diferenciados; las mandíbulas llevan un diente apical y varios dientes marginales, y los alados presentan una venación alar reticulada con un campo anal bien desarrollado, lo que hace de este uno de los grupos de termitas actuales que conserva el mayor número de caracteres primitivos. La cápsula cefálica del soldado es redondeada y de color pardo rojizo, con mandíbulas cortas y robustas y dientes apicales largos; en la mandíbula derecha ambos dientes marginales están bien desarrollados, mientras que en la mandíbula izquierda solo el primer diente marginal es distinto y los demás están reducidos (esta fórmula dentaria es diagnóstica y exclusiva de la familia). Tanto en los soldados como en las obreras, cada coxa anterior lleva un proceso semejante a un lóbulo, y las superficies ventrales de los fémures y las tibias llevan hileras de pequeños dientes opuestos, un rasgo apendicular exclusivo de la familia. Este listado registra 1 género y 1 especie.
La especie actual se distribuye en las regiones tropicales del norte de Australia (Territorio del Norte, norte de Queensland y región de Kimberley de Australia Occidental) y ha sido introducida en Papúa Nueva Guinea. Esta familia es el linaje de divergencia más temprana de las termitas actuales(2); el ala posterior tiene una amplia área anal(3), los tarsos tienen 5 segmentos y los huevos se depositan en ootecas semejantes a las de las cucarachas—rasgos que también se encuentran en las cucarachas xilófagas relacionadas (p. ej., Cryptocercus). Los nidos se construyen bajo tierra, en troncos caídos y en el cuello de la raíz de los árboles, sin montículos expuestos; las colonias son de tamaño moderado en condiciones naturales, pero pueden alcanzar el orden de los cien mil individuos o incluso más en ambientes modificados por el hombre, y pueden propagarse por gemación de colonias con reproductivos suplementarios. Desde el punto de vista económico, Mastotermes darwiniensis es una plaga importante en el norte de Australia que daña la madera estructural y los árboles vivos(4). La población invasora fue introducida en Lae, Papúa Nueva Guinea, con mercancías transportadas alrededor de la década de 1950 (hacia 1959); entre 1962 y 1973 se llevó a cabo un programa de erradicación y en su momento se consideró que la especie había sido erradicada, pero reapareció a comienzos de la década de 1990 y en 2002 se descubrieron de nuevo nuevos sitios de infestación. Actualmente se ha propagado a 42 especies de árboles nativos y exóticos en esa región, y el área afectada es aproximadamente seis veces mayor que en 1973. La especie también se ha extendido hacia el sur dentro de Australia hasta Gold Coast (unos 800 km al sur del límite meridional de su área de distribución nativa), lo que representa una expansión del área de distribución dentro de su distribución nativa.
ARCHOTERMOPSIDAE 古白蚁科
La familia Archotermopsidae fue establecida por Engel, Grimaldi y Krishna en 2009 (Engel, Grimaldi & Krishna, 2009: 11)(5), con el género tipo Archotermopsis Desneux, 1904. El nombre de la familia deriva del género tipo: Archotermopsis se forma a partir del griego archaios (antiguo) combinado con Termopsis (el nombre de género Termopsis). Esta familia es uno de los grupos conocidos comúnmente como las “termitas de madera húmeda”; los soldados tienen mandíbulas robustas con dientes apicales y marginales distintos, cabeza aplanada, sin fontanela, y un tamaño corporal grande. Los soldados presentan una sutura visible en forma de Y en la superficie dorsal de la cabeza, ojos reducidos, 19–27 segmentos antenales, tres dientes marginales en la mandíbula izquierda y dos en la derecha, un pronoto plano más estrecho que la cabeza y tarsos de 5 segmentos; los adultos alados tienen ocelos distintos y un cuerpo grande. Este listado incluye 2 géneros y 5 especies.
La distribución de esta familia muestra un patrón templado septentrional disyunto: el género Zootermopsis está restringido al oeste de América del Norte (desde la costa oeste hasta el suroeste), mientras que el género Archotermopsis se distribuye en China, Vietnam, Asia meridional y regiones adyacentes. Ambos géneros habitan troncos caídos y tocones en descomposición en ambientes húmedos y construyen su nido dentro de una sola pieza de madera; la colonia nunca abandona su fuente de alimento a lo largo de su vida, y el trabajo lo realizan pseudoergates. Zootermopsis angusticollis se estableció en Hawái (a gran altitud en Maui) alrededor de 1999, y Zootermopsis nevadensis fue registrada por primera vez en Japón, en Kawanishi, en 2000 (4). Esta familia tiene escasa tolerancia a los ambientes secos y por lo general no daña la madera estructural seca, pero en América del Norte Zootermopsis ataca los elementos estructurales de madera húmedos a lo largo de la costa del Pacífico, donde es una plaga importante de edificios como termita de madera húmeda (6).
HODOTERMITIDAE 草白蚁科
La familia Hodotermitidae fue establecida por Desneux en 1904 (Desneux, 1904: 284)(1), con el género tipo Hodotermes Hagen, 1853. El nombre de la familia deriva del género tipo: Hodotermes se forma a partir del griego hodos (camino, vagabundeo) y termes, en referencia a su hábito de forrajear sobre el suelo. Este listado incluye 3 géneros y 21 especies.
Esta familia comprende las termitas “cosechadoras”, endémicas de las zonas áridas de los reinos afrotropical y paleártico, con los tres géneros distribuidos aproximadamente de la siguiente manera: Hodotermes Hagen, 1853 se distribuye en el sur y el este de África; Microhodotermes Sjöstedt, 1926 abarca Sudáfrica, Namibia y el norte de África; Anacanthotermes Jacobson, 1905 se distribuye en los desiertos(7) y semidesiertos del norte de África, la península de Arabia, Oriente Medio hasta Asia Central, y Asia meridional. A diferencia de la mayoría de las termitas, tanto las obreras como los adultos de esta familia poseen ojos compuestos bien desarrollados; forrajean abiertamente sobre el suelo de noche o al amanecer y al anochecer, alimentándose de gramíneas, pasto seco y tallos y hojas de plantas, con los márgenes internos aserrados de las mandíbulas adaptados para cortar tallos de gramíneas. Anidan bajo tierra, conectados por complejas redes de túneles, y algunas especies construyen montículos bajos. Los soldados de esta familia carecen de fontanela; la cápsula cefálica es de subcircular a oval, fuertemente esclerotizada y de color oscuro, con mandíbulas cortas y robustas cuyas mitades apicales están fuertemente incurvadas. Las obreras grandes tienen una cabeza muy grande y aplanada (observada solo en Hodotermes); los adultos alados poseen ocelos. Desde el punto de vista económico, los hodotérmitidos consumen forraje en las tierras de pastoreo africanas y sus montículos interfieren con la maquinaria agrícola(8), y unas pocas especies se alimentan de cultivos en zonas agrícolas. Entre ellos, Anacanthotermes turkestanicus es una plaga grave de los componentes de madera de viviendas y edificios históricos en Asia Central(9), y Microhodotermes viator daña el forraje de las tierras de pastoreo en el Karoo de Sudáfrica(10).
HODOTERMOPSIDAE 原白蚁科
La familia Hodotermopsidae fue propuesta por Engel en 2021(11). El género tipo es Hodotermopsis Holmgren, 1911. El nombre de la familia deriva del género tipo: Hodotermopsis significa “semejante a Hodotermes”, formado por Hodotermes más el griego opsis (apariencia). Este listado incluye 1 género y 1 especie.
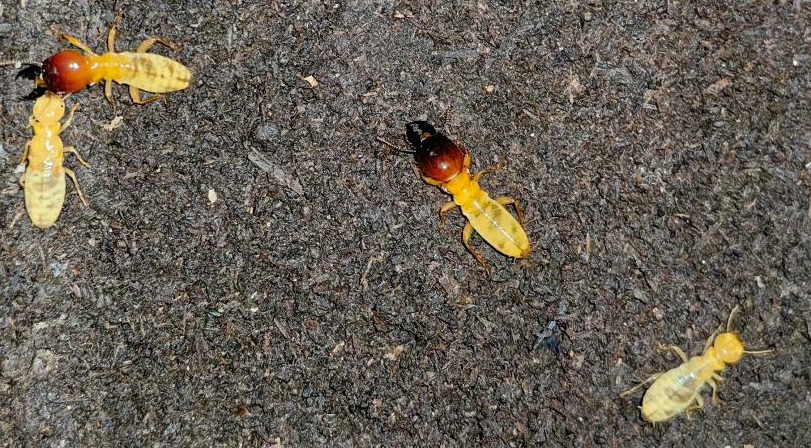
La especie actual Hodotermopsis sjostedti se distribuye en Japón, Taiwán (China), el sur de China y Vietnam(12). En consonancia con sus parientes cercanos, Hodotermopsis habita madera húmeda en descomposición; la colonia anida dentro de troncos caídos y vive en un nido de una sola pieza de madera, y el trabajo dentro del nido lo realizan pseudoergates. Los soldados tienen una cabeza aplanada, de subcuadrada a oval, con la mitad anterior más oscura; el vértice presenta una depresión central; los ocelos son distintos y arriñonados; las mandíbulas son robustas y simétricas, con la mandíbula izquierda provista de cuatro y la mandíbula derecha de dos dientes marginales grandes; las antenas tienen 22–24 segmentos; el pronoto es semilunar y ligeramente más estrecho que la cabeza. Los adultos alados miden 12–13.5 mm de longitud, tienen 21–26 segmentos antenales y la escama del ala anterior es ligeramente mayor que la del ala posterior. Desde el punto de vista económico, Hodotermopsis sjostedti daña árboles vivos y talados en el sur de China y es una plaga perforadora de la madera(13)
STOLOTERMITIDAE 胄白蚁科
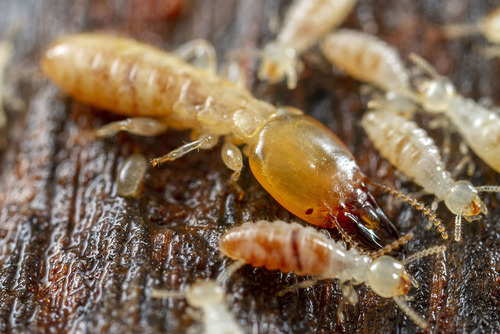
La familia Stolotermitidae fue establecida por Holmgren en 1910 (Holmgren, 1910a: 285)(14), con el género tipo Stolotermes Hagen, 1858. El nombre de la familia deriva del género tipo Stolotermes (griego stolos, columna/expedición, explicado popularmente como referido a sus actividades de marcha). Los soldados de esta familia tienen una cápsula cefálica esclerotizada y muy pigmentada, mandíbulas largas y grandes, y tarsos de 4 segmentos. Este listado incluye 2 géneros y 10 especies.
Esta familia comprende las “termitas de madera húmeda” con una típica distribución disyunta gondwánica: Porotermes se distribuye en Australia, Sudáfrica, Chile y el sur de América del Sur; Stolotermes se distribuye en Australia, Nueva Zelanda y Sudáfrica. Ambos géneros habitan troncos caídos húmedos y en descomposición y la zona situada bajo la corteza de árboles muertos en pie; las colonias anidan dentro de la madera y viven en nidos de una sola pieza de madera. El patrón biogeográfico histórico de esta familia pudo haber estado influido tanto por las conexiones terrestres tempranas como por la dispersión transoceánica posterior, y la distribución de los géneros actuales no puede explicarse únicamente por la fragmentación de Gondwana. Desde el punto de vista económico, Porotermes quadricollis daña ocasionalmente estructuras de madera húmedas en Chile(15). Según Evans et al. (2013)(4), Porotermes adamsoni fue introducida en Nueva Zelanda con traviesas de ferrocarril de madera importadas en 1941, y actualmente se distribuye en cinco sitios de la Isla Norte y uno de la Isla Sur, y aparece en madera aserrada importada y en árboles.
KALOTERMITIDAE 木白蚁科
La familia Kalotermitidae fue establecida por Froggatt en 1897(16), con el género tipo Kalotermes Hagen, 1853. El nombre de la familia deriva del género tipo, formado a partir del griego kalos (hermoso) y termes. Este listado incluye 23 géneros y 479 especies.
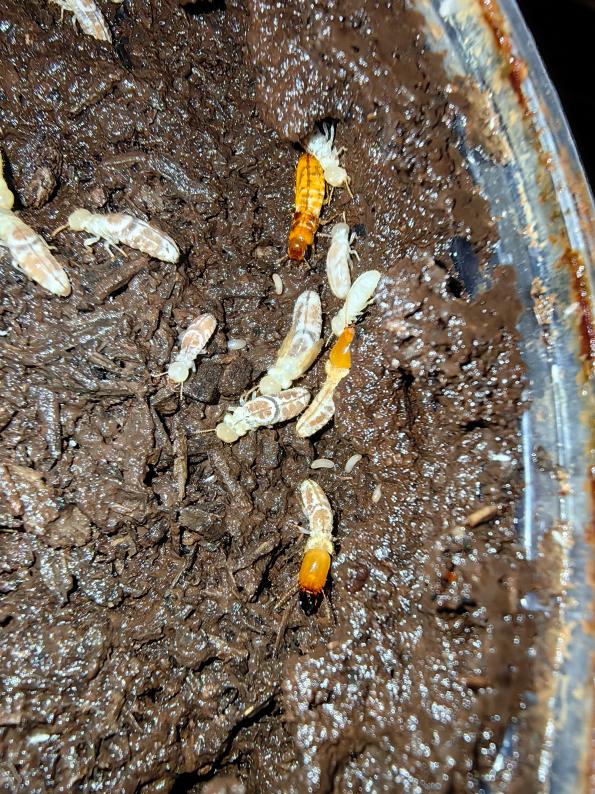
Esta familia se conoce comúnmente como las 'termitas de madera seca'. La mayoría de las especies construyen sus nidos y se alimentan dentro de madera seca, no dependen del suelo, y su nido es también su fuente de alimento, de modo que los individuos no abandonan el nido para forrajear a largas distancias. La familia carece de una casta de obreras verdadera, y el trabajo del nido lo realizan pseudoergates. Los soldados son del tipo mandibulado, con la cabeza aproximadamente rectangular y sin fontanela; los alados poseen ocelos, por los cuales pueden distinguirse de los grupos que poseen fontanela, como Rhinotermitidae y Termitidae. En cuanto a su distribución, la familia es pantropical a subtropical, extendiéndose hacia regiones templado-cálidas como las de clima mediterráneo, y es especialmente diversa en las ramas muertas y la madera quebrada del dosel del bosque tropical. Filogenéticamente, esta familia es uno de los linajes que divergieron más tempranamente entre las termitas vivientes (17), y es el grupo hermano de Neoisoptera, por lo que es importante para comprender la evolución temprana de la eusocialidad en las termitas. En lo que respecta a la invasión y la dispersión, las termitas de madera seca de esta familia son el grupo transportado por madera más común en el mundo tropical y subtropical: Incisitermes minor, la termita de madera seca occidental (nativa del oeste de Estados Unidos y el norte de México, e introducida en Canadá, China, Japón, Italia y Hawái (Estados Unidos)); Cryptotermes brevis, la termita de madera seca de las Indias Occidentales, es nativa de las regiones desérticas de la costa pacífica de América del Sur y ha sido dispersada mediante madera transportada por vía marítima hacia el sureste de Estados Unidos, Hawái, las islas del Caribe, Sudáfrica, Madagascar y Australia, lo que la convierte en la especie invasora de termita de madera seca de distribución más amplia (18); Cryptotermes domesticus, la termita de madera seca doméstica, es nativa del sudeste asiático y ha sido introducida en las zonas costeras del sur de China, Taiwán, Japón, Australia y las islas del Pacífico; Cryptotermes dudleyi es nativa de la región oriental y ha establecido poblaciones en el Panamá neotropical, Costa Rica, Colombia, Brasil y las Indias Occidentales; Cryptotermes havilandi es nativa de África tropical y también ha establecido poblaciones en Surinam, Guyana, Brasil y las Indias Occidentales. Además, Cryptotermes cynocephalus Light es nativa de Filipinas y el sudeste asiático y ha sido introducida en Sri Lanka, el área al norte de la península de Cabo York en Australia, Rabaul en Papúa Nueva Guinea y Hawái (registrada por primera vez en Oahu); Glyptotermes breviconis, del género Glyptotermes, es nativa de la costa sudoriental de Australia y ha establecido poblaciones locales en árboles naturales de Nueva Zelanda y Fiyi. En Sri Lanka, las plantaciones de té son atacadas por Postelectrotermes militaris y Glyptotermes dilatatus, que dañan las plantas de té (19); géneros como Bifiditermes, Eucryptotermes, Marginitermes, Paraneotermes, Procryptotermes y Rugitermes son plagas menores de la madera estructural (20).
PSAMMOTERMITIDAE 沙白蚁科
La subfamilia Psammotermitinae fue establecida por Holmgren en 1911, y fue elevada a la categoría de familia (Psammotermitidae) por un estudio filogenético de 2024(21). El género tipo es Psammotermes Desneux, 1902; el nombre de la familia se forma a partir del griego psammos (arena) y termes, en referencia a su hábito de habitar en suelo arenoso. Esta lista de verificación incluye 2 géneros y 18 especies.
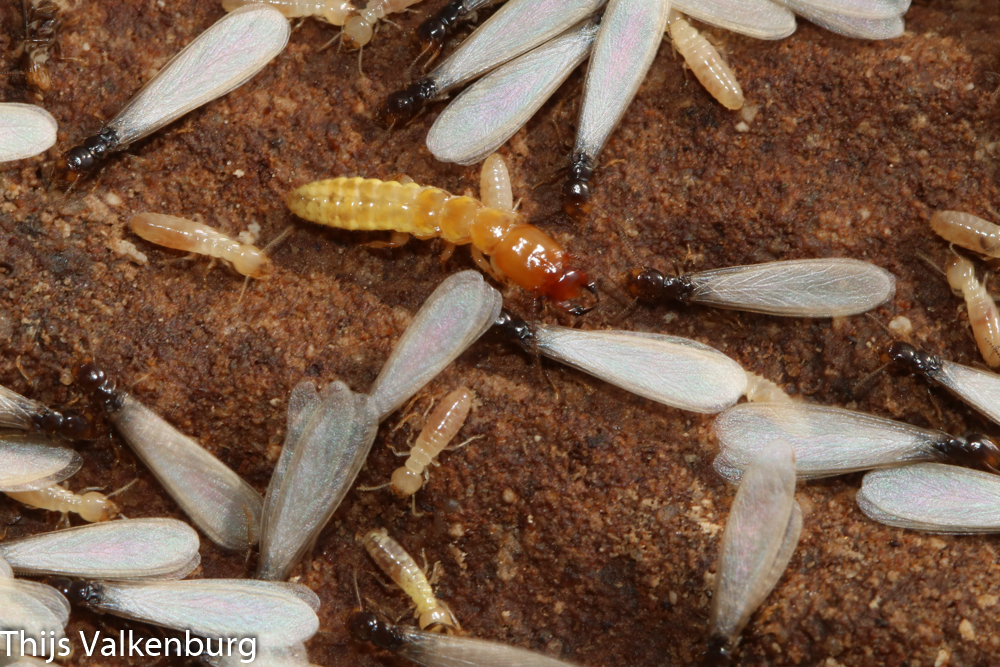
Esta familia contiene solo dos géneros vivientes, y ambos géneros contrastan marcadamente en sus hábitos ecológicos. Ambos carecen de una casta de obreras verdadera (el trabajo del nido lo realizan pseudoergates). Los soldados son del tipo mandibulado, con una cápsula cefálica esclerotizada que es oval a ligeramente estrechada anteriormente; la frente posee una fontanela, desde la cual un surco longitudinal, ya sea marcado o tenue, se extiende hacia el posclípeo; la fórmula de espinas tibiales de las patas anterior, media y posterior del soldado es 3:2:2. En los alados el pronoto es plano, los tarsos son de cuatro segmentos, la fontanela se sitúa en el centro de la cabeza, los ocelos están presentes y las antenas tienen 15-22 artejos. Psammotermes es una termita desértica típica, ampliamente distribuida desde el sur de África hasta África occidental, el nordeste y el norte de África, a través de la península arábiga e Irán hasta el noroeste de la India, y presente también en Madagascar; excava sus propias cámaras de nido y galerías en suelo arenoso, ocupa también nidos abandonados de otras termitas, y tiene hábitos alimentarios sumamente amplios, aprovechando hierba seca, hojarasca, excrementos de animales e incluso acumulaciones de restos orgánicos arrastrados por el viento. Prorhinotermes es de tipo insular-costero, ampliamente distribuido por las islas del océano Índico, el sur de Asia, el sudeste asiático, el sur de China y Taiwán, el norte de Australia y las islas del Pacífico occidental, y presente también en América Central y el Caribe; se cree que sus colonias se dispersan con las corrientes oceánicas sobre madera a la deriva, y habita mayormente madera húmeda y en descomposición cerca de la zona intermareal, como los hábitats de manglar (22). Algunas especies de Psammotermes dañan cultivos y estructuras de tierra en regiones áridas. Por ejemplo, Psammotermes hypostoma daña estructuras de madera y cultivos en el norte de África y el Oriente Medio (23), y Prorhinotermes simplex daña edificaciones de madera en Florida, Estados Unidos (24).
RHINOTERMITIDAE 鼻白蚁科
La subfamilia Rhinotermitinae fue establecida por Froggatt en 1897; aquí se adopta la circunscripción restringida de Rhinotermitidae sensu novo, tal como fue redefinida por el estudio filogenético de 2024(21), que contiene 5 géneros. El género tipo es Rhinotermes Hagen, 1858; el nombre de la familia se forma a partir del griego rhis/rhinos (nariz) y termes, en referencia al clípeo elevado, semejante a una nariz, de los adultos y al estrecho surco que va de la fontanela al clípeo. Esta lista de verificación incluye 5 géneros y 62 especies.
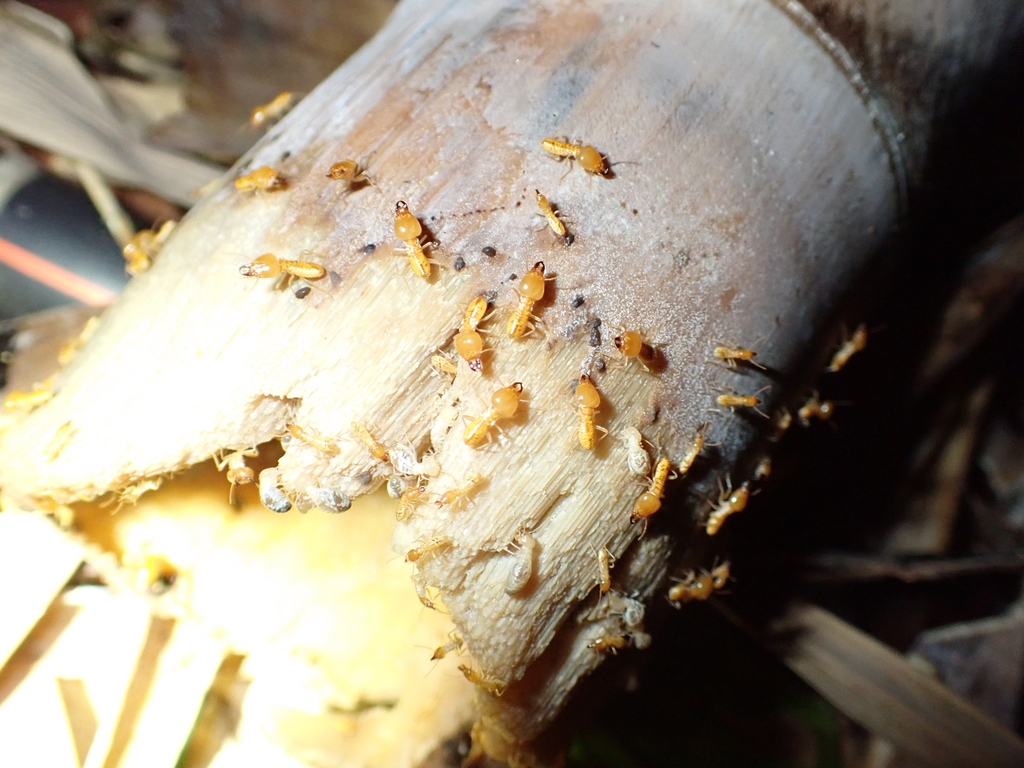
Acorhinotermes, Dolichorhinotermes y Rhinotermes son principalmente neotropicales (del norte de América del Sur al Caribe); Parrhinotermes es principalmente del sudeste asiático, extendiéndose al oeste hasta el nordeste de la India, al norte hasta el Tíbet y Yunnan de China, y al este hasta Papúa Nueva Guinea, las islas Salomón y Queensland, Australia; Schedorhinotermes está ampliamente distribuido en las regiones afrotropical y oriental, Australia y las islas del Pacífico occidental. Esta familia tiene una casta de obreras verdadera, que a menudo anida en el suelo o en madera en contacto con el suelo, y las obreras salen por túneles para alimentarse de madera; los soldados son en su mayoría dimórficos (unos pocos trimórficos), con el labro alargado y semejante a un palpo, en forma de cepillo en el ápice y con un surco en el centro, a lo largo del cual fluye la secreción de la glándula frontal para repeler a los enemigos—un carácter diagnóstico importante que distingue a esta familia de las familias relacionadas. En esta familia, las obreras y los alados presentan tres dientes marginales distintos y desiguales detrás del diente apical de la mandíbula izquierda; el margen anterior del posclípeo es marcadamente arqueado en los alados, las obreras y los soldados; y la fontanela de los soldados carece de setas largas alrededor de su margen. Desde el punto de vista económico, Schedorhinotermes daña comúnmente la madera estructural dentro de su área de distribución, como Schedorhinotermes intermedius en el este de Australia(25); Schedorhinotermes longirostris (nativa de la India, Indonesia, Malasia, Palau y Papúa Nueva Guinea, introducida en Guam, EE. UU.) fue introducida en Guam en 2011 y daña allí las cícadas endémicas.
SERRITERMITIDAE 齿白蚁科
La familia Serritermitidae fue establecida por Holmgren en 1910 (Serritermitidae Holmgren, 1910) (14), con el género tipo Serritermes Wasmann, 1897. El nombre de la familia deriva del nombre del género tipo, formado por la combinación del latín serra (sierra) con termes, en referencia a los márgenes de las mandíbulas conspicuamente aserrados y con numerosos dientes en los soldados y reproductores de esta familia. Esta lista de verificación registra 2 géneros y 3 especies.
Esta familia es una familia pequeña endémica de la región neotropical, presente desde el norte de América del Sur (el escudo de las Guayanas) hasta Brasil. Carece de una casta de obreras verdadera. Los dos géneros difieren marcadamente en su modo de vida: Glossotermes es una termita que habita en la madera y vive dentro de troncos caídos secos y en descomposición, mientras que S. serrifer es un inquilino obligado raro entre las termitas, que pasa toda su vida dentro de los nidos-montículo epigeos de la termítido Cornitermes cumulans sin construir un nido propio; sus soldados tienen mandíbulas en forma de hoz con márgenes internos aserrados. En esta familia la cabeza del soldado es alargada, con márgenes laterales arqueados, y presenta una fontanela pequeña y de fondo ciego en la parte anterior de la cabeza que no se comunica con la glándula frontal; las antenas tienen 12–15 artejos (12–13 en Serritermes, 13–15 en Glossotermes). La glándula frontal del soldado está sumamente bien desarrollada, extendiéndose desde la cabeza hasta la mitad anterior del tórax y del abdomen; al defenderse, libera la secreción por la parte posterior del cuello mediante autorruptura (autotisis) (26).
STYLOTERMITIDAE 杆白蚁科
La familia Stylotermitidae es una familia viviente monotípica, que contiene únicamente el género Stylotermes Holmgren & Holmgren, 1917. El grupo fue establecido por Holmgren y Holmgren en 1917, con Stylotermes como género tipo. El nombre de la familia deriva del género tipo, del griego stylos (columna) más termes. (3) Esta lista de verificación registra 1 géneros y 45 especies.
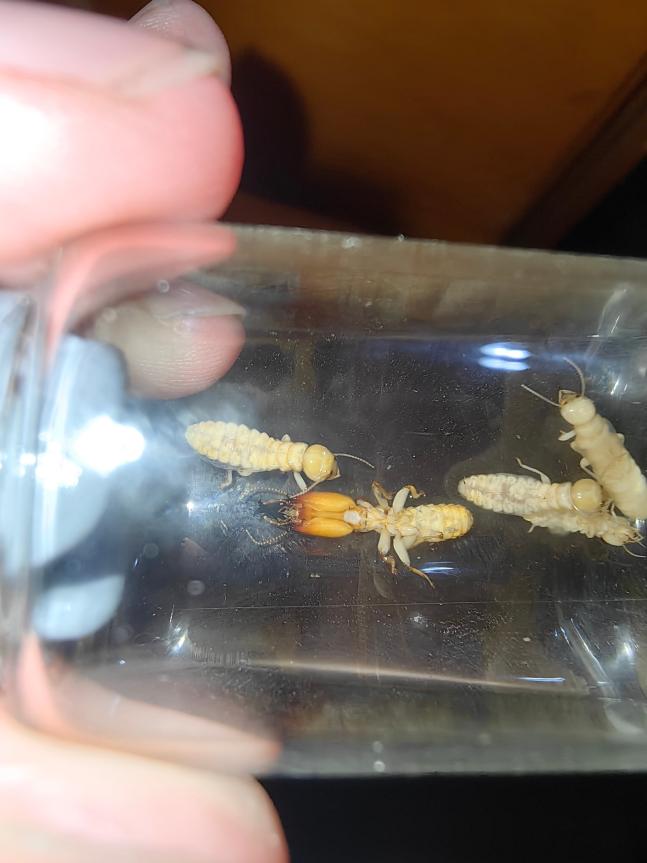
Esta familia es endémica de la región oriental (sur y sudeste de Asia). Unas 35 especies son endémicas de las montañas del sur de China, y la familia se extiende hacia el oeste hasta la India y Bangladés, hacia el este hasta Taiwán, China, y hacia el sur hasta Brunéi y Malasia; China es el centro moderno de diversificación de la familia, y también existen registros de recolección en las montañas del nordeste de la India. A diferencia de la mayoría de las termitas que habitan en la madera, que viven en madera muerta caída, Stylotermes vive dentro de la madera de árboles vivos o de árboles muertos muy recientemente, siendo una termita xilófaga oculta; no tiene una casta de obreras verdadera, sino que el trabajo lo realizan pseudoergates, y los soldados tienen una cápsula cefálica alargada y estrecha y mandíbulas en forma de cimitarra. En esta familia los alados tienen la cabeza casi redonda, una fontanela sumamente pequeña que a veces es invisible externamente, ocelos pequeños, antenas de 16–22 artejos y un pronoto plano. En todas las castas de la familia los tarsos son de 3 segmentos y la fórmula de espinas tibiales es 3:2:2, un carácter primitivo raramente observado entre las termitas actuales. Los soldados y las obreras poseen una glándula frontal pequeña pero activa que secreta compuestos monoterpénicos para la defensa (estudiada en S. faveolus y S. halumicus); también se han registrado específicamente feromonas de seguimiento de rastro en estas dos especies (27). Filogenéticamente, la familia es el grupo hermano de todos los demás Neoisoptera, siendo el linaje viviente de Neoisoptera que divergió más tempranamente, y es de gran importancia para comprender la evolución de la glándula frontal y de la diferenciación de castas. Desde el punto de vista económico, la familia habita árboles vivos y anida dentro de madera en pie viva, siendo un grupo raro que vive en árboles entre las termitas y que puede debilitar e incluso matar árboles vivos (28).
TERMITOGETONIDAE 寡脉白蚁科
La subfamilia Termitogetoninae fue establecida por Holmgren en 1910 (1910a:286) (14); en 2024, un estudio filogenético genómico la elevó de subfamilia a categoría de familia (Termitogetonidae) (21). La familia Termitogetonidae es monotípica y contiene únicamente el género Termitogeton Desneux, 1904. El nombre de la familia se basa en el tallo Termitogeton, formado a partir de termes y del griego geiton (vecino), que significa "uno cercano al género Termes". Esta lista de verificación registra 1 géneros y 2 especies.
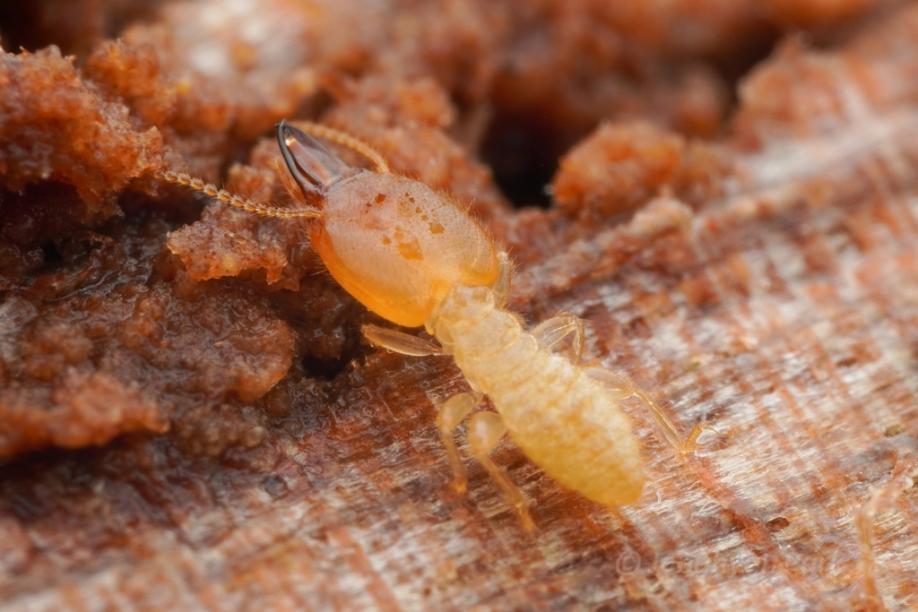
En cuanto a su distribución, se trata de una pequeña familia del reino oriental, presente en el sudeste asiático (Indonesia, Malasia) y Sri Lanka, que habita madera muerta o en descomposición en las selvas tropicales. La familia carece de obreras verdaderas; el trabajo lo realizan los pseudergados. Los soldados poseen una glándula frontal capaz de secretar sustancias defensivas y de alarma que contienen monoterpenos y otros componentes (29); la proporción de sexos es cercana a 1:1 en todas las castas, salvo que las hembras son algo más numerosas entre los soldados (30). La vía de desarrollo comprende 2 estadios larvales, 4 estadios de pseudergado (30) y 1 estadio ninfal antes de alcanzar el estado adulto; los rudimentos alares aparecen en el segundo estadio, regresan en las mudas siguientes y vuelven a aparecer en el estadio ninfal, y una colonia madura consta de solo unos mil individuos. El cuerpo es aplanado dorsoventralmente en todas las castas, una adaptación a vivir bajo la corteza. Los alados tienen la cabeza casi triangular, ojos compuestos pequeños con ocelos presentes, antenas de 15 segmentos y el cuerpo densamente cubierto de setas; el pronoto es más estrecho que la cabeza y su margen anterior se prolonga en un lóbulo en el centro; las alas están densamente cubiertas de pelos finos, y la escama del ala anterior no se superpone a la del ala posterior. En el pseudergado, la mandíbula izquierda lleva un diente apical y 3 dientes marginales, siendo el segundo diente marginal más largo que el diente apical y que el primer diente marginal; la fórmula de espolones tibiales de todas las patas es 2:2:2. El soldado tiene la cabeza triangular con el margen posterior fuertemente ondulado y prolongado en el centro, mandíbulas delgadas sin dientes marginales (solo una hilera de dentículos finos en la base), antenas de 13–15 segmentos y coxas posteriores ensanchadas.
HETEROTERMITIDAE 异白蚁科
La subfamilia Heterotermitinae fue establecida por Froggatt en 1897 y durante mucho tiempo se ubicó en Rhinotermitidae; en 2024, un estudio filogenético la elevó al rango de familia (Heterotermitidae) (21), incorporando los géneros Coptotermes y Reticulitermes, y actualmente contiene 3 géneros. El género tipo es Heterotermes Froggatt, 1897, y el nombre de la familia se forma a partir del griego heteros (diferente) y termes. Esta lista registra 3 géneros y 229 especies.
Esta familia se distribuye ampliamente desde el ámbito pantropical hasta la zona templada septentrional, y los tres géneros muestran patrones de distribución marcadamente diferentes: Coptotermes es pantropical, con su centro de diversidad en el reino oriental y Australia, y también está presente en África tropical, el Neotrópico y las islas del Indo-Pacífico; Heterotermes se encuentra principalmente en el reino neotropical, y también en Australia, Asia meridional, Oriente Medio hasta el nordeste de África y las islas del oeste del océano Índico; Reticulitermes está confinado al hemisferio norte templado, con China como centro de diversidad (más de cien especies endémicas de China), y también se distribuye ampliamente en Japón, la península de Corea, Taiwán, la India, la Europa mediterránea y América del Norte. Esta familia y los demás Geoisoptera tienen un número cromosómico estable de 2n=42, poseen una casta de obreras verdaderas y forman colonias enormes; en la mayoría de las especies las colonias maduras dependen ecológicamente en alto grado del suelo, anidan en el suelo o en nidos de cartón construidos con fragmentos de madera, saliva y heces, y las obreras construyen túneles y revestimientos de barro para forrajear madera en el exterior, de modo que el nido queda separado de la fuente de alimento, aunque a menudo todavía pueden anidar y sobrevivir dentro de la madera. En Coptotermes la cabeza del soldado es ovalada con una fontanela grande orientada hacia delante (31), de la que se exuda un fluido lechoso cuando se lo molesta; en Heterotermes y Reticulitermes la cabeza del soldado es casi rectangular con una fontanela pequeña y poco conspicua. Los caracteres diagnósticos compartidos por los soldados de los tres géneros son las mandíbulas largas y en forma de cuchillo, sin dientes marginales distintos en el margen interno (solo finas serraciones en la base), una fontanela rodeada de setas y más de 3 espolones apicales en la tibia anterior. En las obreras y los alados el margen anterior del postclípeo es plano o ligeramente cóncavo; los alados poseen fontanela y ocelos; el pronoto es plano y más estrecho que la cabeza; los tarsos son de 4 segmentos; no hay arolio entre las uñas; y el intestino posterior de la obrera carece de segmento mixto.
Esta familia es el grupo de termitas de mayor importancia económica del mundo: Coptotermes formosanus (la termita subterránea de Formosa) y C. gestroi se consideran en conjunto las dos termitas estructurales más destructivas del mundo, y juntas representan más de la mitad de las pérdidas económicas anuales causadas por las termitas a nivel global. La primera ha sido incluida por la ISSG en la lista "100 of the World's Worst Invasive Alien Species" (32), mientras que la segunda causa el 80%–90% de los daños por insectos a las estructuras artificiales en Singapur y Malasia. C. curvignathus es una plaga peligrosa de las plantaciones de caucho, cocotero y palma aceitera en el sudeste asiático, y también es un objetivo cuarentenario para la importación a China (33). C. acinaciformis y C. frenchi han sido introducidas desde Australia a Nueva Zelanda; C. curvignathus ha sido introducida desde el sudeste asiático a China, Filipinas y Sudáfrica; C. gestroi, nativa del sudeste asiático, se ha dispersado a decenas de países y regiones tropicales; C. sjostedti ha sido introducida desde África occidental a Guadalupe (Francia); C. truncatus ha sido introducida desde Madagascar a las Seychelles; y la especie norteamericana R. flavipes ha sido introducida, mediante el comercio, desde el este de América del Norte a Europa (Francia, Alemania, Austria), Chile, Uruguay, las Bahamas y Guatemala. En el reino neotropical, Heterotermes tenuis daña plántulas de caña de azúcar y eucalipto en Brasil (34).
TERMITIDAE 白蚁科
La familia Termitidae fue establecida por Latreille en 1802, con el género tipo Termes Linnaeus, 1758. El nombre de la familia se forma a partir del radical del género tipo, Termit-, más el sufijo de nivel de familia -idae. Esta lista registra 280 géneros y 2144 especies.
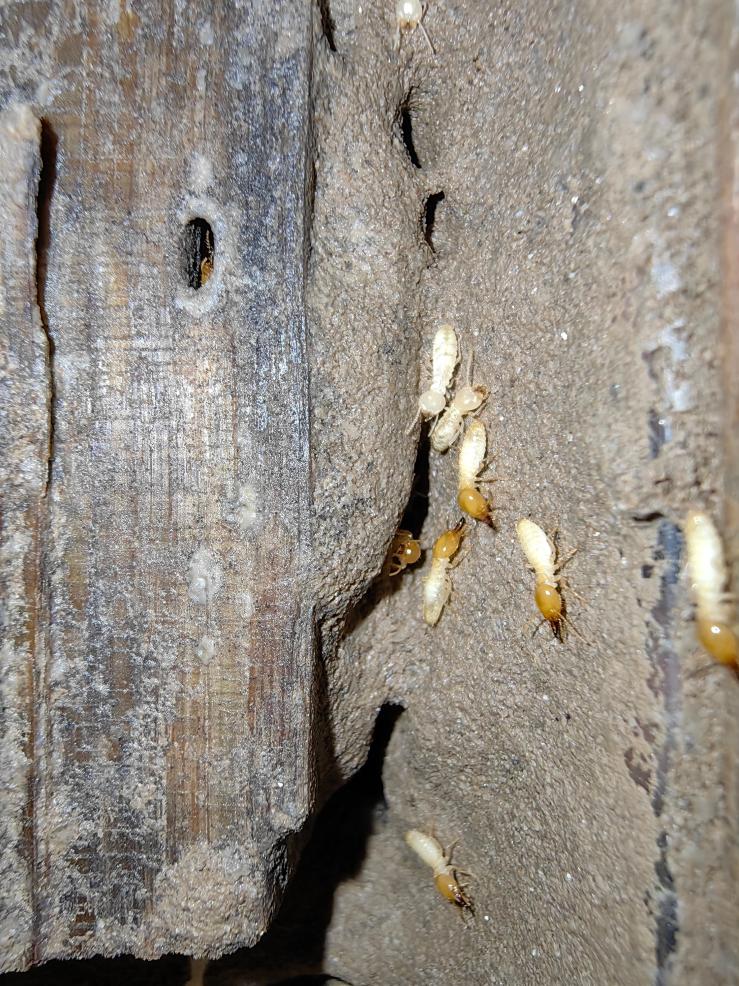
Esta familia presenta una distribución pantropical, con representantes en todas las principales regiones zoogeográficas de los trópicos y subtrópicos, y algunas especies que se extienden hacia zonas templado-cálidas. Sus hábitos alimentarios son los más diversos entre las familias de termitas, e incluyen tipos xilófagos, graminívoros, consumidores de hojarasca, consumidores de humus y cultivadores de hongos; unas pocas especies se alimentan de líquenes y algas que crecen sobre la corteza (como el género Constrictotermes), mientras que las especies inquilinas se alimentan del material del nido y de las heces de su nido huésped (como el género Inquilinitermes); cerca del sesenta por ciento de las especies son consumidoras especializadas de humus del suelo. A diferencia de otras familias, el intestino posterior de esta familia está muy compartimentado, y sus simbiontes digestivos están dominados por bacterias y arqueas. El rasgo compartido más conspicuo de los soldados de los termítidos es la glándula frontal impar y saculiforme (35), cuya abertura externa es la fontanela, aunque las estrategias defensivas divergen en torno a esta estructura. Nasutitermitinae es la subfamilia más grande de la familia; en ella la parte anterior de la cabeza del soldado se prolonga en un naso cónico, las mandíbulas están reducidas y el soldado depende por completo de la glándula frontal para eyectar por la fontanela, en el ápice del naso, una secreción pegajosa que enreda a los enemigos; los Syntermitinae, que también poseen naso, conservan mandíbulas bien desarrolladas y emplean defensa tanto mecánica como química. El otro extremo se observa en los grupos de mandíbulas chasqueadoras de los Mirocapritermitinae, como el género Pericapritermes, que rechazan a los enemigos mediante un súbito golpe cruzado de las dos mandíbulas, mientras que la glándula frontal está poco desarrollada; Globitermes sulphureus va aún más lejos y utiliza la ruptura de la glándula frontal para una defensa suicida. Algunos linajes de la familia han perdido la casta de soldados, siendo ejemplo de ello las especies neotropicales de Apicotermitinae, en las que la defensa corre enteramente a cargo de las obreras. En los alados el pronoto tiene forma de silla de montar, el ala posterior carece de lóbulo anal y presenta nerviación simplificada, y hay fontanela y ocelos; en las obreras el postclípeo está hinchado en forma globular y el intestino posterior tiene un segmento mixto, y las antenas suelen tener 13-15 segmentos, mientras que las de los soldados suelen tener 12-16 segmentos. Los caracteres diagnósticos detallados de los soldados y las obreras de cada subfamilia se presentan en las secciones de subfamilia siguientes. Los patrones de anidación son diversos, e incluyen nidos subterráneos, montículos superficiales y nidos de cartón arbóreos, y los nidos de esta familia son las estructuras de ingeniería ecológica más conspicuas de las selvas tropicales y las sabanas. Termitidae es el grupo más rico en especies dentro de Neoisoptera; comenzó a irradiar hacia el final del Eoceno y experimentó una rápida radiación interna durante el Paleógeno.
La familia se divide actualmente en 18 subfamilias (21): Amitermitinae (14 géneros, 194 especies), Apicotermitinae (68 géneros, 241 especies), Crepititermitinae (1 géneros, 1 especies), Cubitermitinae (28 géneros, 149 especies), Cylindrotermitinae (2 géneros, 9 especies), Engelitermitinae (1 géneros, 1 especies), Foraminitermitinae (3 géneros, 10 especies), Forficulitermitinae (1 géneros, 1 especies), Macrotermitinae (12 géneros, 373 especies), Microcerotermitinae (2 géneros, 150 especies), Mirocapritermitinae (14 géneros, 135 especies), Nasutitermitinae (81 géneros, 606 especies), Neocapritermitinae (3 géneros, 20 especies), Promirotermitinae (2 géneros, 39 especies), Protohamitermitinae (2 géneros, 2 especies), Sphaerotermitinae (1 géneros, 1 especies), Syntermitinae (22 géneros, 105 especies) y Termitinae (23 géneros, 107 especies). Los daños económicos causados por esta familia se detallan en cada subfamilia.
Amitermitinae 弓白蚁亚科
La subfamilia Amitermitinae fue establecida por Kemner en 1934 (página 110 de la obra original), con el género tipo Amitermes Silvestri, 1901, del cual se toma el nombre de la subfamilia. Amitermes deriva probablemente del latín hami- "gancho" más termes, en referencia a las mandíbulas curvadas en forma de arco de los soldados. Esta lista registra 14 géneros y 194 especies.
Esta subfamilia se distribuye principalmente en Australia y el reino afrotropical, y se extiende hasta el reino neotropical, Oriente Medio, Asia meridional y el sur de los Estados Unidos. Su dieta abarca una variedad de sustratos, entre ellos madera podrida, hierba seca y la interfaz suelo–madera. La cabeza del soldado es en su mayor parte piriforme y carece de proyección frontal, y las mandíbulas varían enormemente entre géneros, presentando tipos mordedor-triturador, perforante, cortante e incluso de chasquido simétrico, lo que hace de este uno de los grupos con la diferenciación más rica de tipos mandibulares defensivos de la familia; entre ellos, el género Invasitermes carece de casta de soldado. En la obrera, el diente apical de la mandíbula izquierda es generalmente más corto que el diente marginal, excepto en Ahamitermes, Invasitermes y Orthognathotermes; el íleon (P1) de la obrera va de tubular a globosamente dilatado y no forma un asa ventral, y los tubos de Malpighi se unen de dos en dos en un nódulo basal común, excepto en Prohamitermes. Los soldados generalmente carecen de proyección frontal, salvo en Eremotermes y Dentispicotermes, cuyos soldados poseen una. Como ejemplifica el género tipo Amitermes, la fontanela del soldado se abre en la parte anterior de la cabeza y la glándula frontal está bien desarrollada; las antenas tienen 13–15 artejos (mayoritariamente 15), y el margen interno de la mandíbula suele llevar un solo diente. Los nidos son principalmente galerías subterráneas, pero algunas especies construyen montículos de tierra o habitan en montículos antiguos. Desde el punto de vista económico, algunas especies de esta subfamilia dañan pastizales y cultivos: la termita desértica norteamericana Gnathamitermes tubiformans consume grandes cantidades de gramíneas y hojarasca en pastizales áridos (36); el género australiano Drepanotermes es un consumidor importante de gramíneas de pastoreo y de hojarasca (37); el género indio Eremotermes daña los cultivos de papa (38); y Globitermes sulphureus daña madera estructural y plantaciones de coco y de palma aceitera en Malasia (39).
Desde el punto de vista económico, esta subfamilia cuenta con registros bien documentados de daños a cultivos en África occidental: Amitermes evuncifer (presente en África occidental, central y oriental) es una de las principales termitas de cultivo mencionadas por los agricultores en Benin, es la especie dañina más común en la comunidad compleja de las plantaciones de caña de azúcar de Ghana (40), es una termita plaga importante en Togo, y también se encuentra en plantaciones de cacao de Côte d'Ivoire y en arrozales de secano de Benin.
Apicotermitinae 尖白蚁亚科
La subfamilia Apicotermitinae fue establecida por Grassé y Noirot en 1955 en su trabajo sobre Apicotermes arquieri (41); el género tipo es Apicotermes Holmgren, 1911, del cual deriva el nombre de la subfamilia. Esta lista incluye 68 géneros y 241 especies.
Esta subfamilia es el principal reservorio de los grupos sin soldados entre las termitas superiores: la gran mayoría de las especies perdió de forma independiente la casta de soldado a lo largo de la evolución (en al menos dos eventos independientes), y solo unos pocos géneros relativamente basales conservan soldados. Los escasos géneros que conservan soldados están todos restringidos al reino afrotropical y al reino oriental: el reino afrotropical cuenta con Machadotermes, Jugositermes, Phoxotermes, Rostrotermes, Coxotermes, Eburnitermes y otros, mientras que el reino oriental cuenta con Indotermes y Eurytermes; todas las especies neotropicales conocidas carecen de soldados. En aquellos grupos que conservan soldados, las mandíbulas del soldado son cortas y robustas, del tipo perforante–cortante, y las mandíbulas de los soldados de Machadotermes son las más cortas de toda la subfamilia; los abdómenes de los soldados de Eburnitermes, Indotermes y Eurytermes son de color blanco lechoso porque se alimentan únicamente de saliva de las obreras (soldados de intestino blanco). En la obrera, el diente apical y el primer diente marginal de la mandíbula izquierda son grandes y se proyectan claramente por encima de la línea que une el tercer diente marginal con la prominencia molar, y por encima de la prominencia molar se observa un diente marginal accesorio (cuarto); el diente apical de la mandíbula derecha es más largo que el primer diente marginal — este es el contorno mandibular común de las obreras de esta subfamilia, mientras que la identificación genérica sigue dependiendo de detalles de la válvula entérica. La alimentación es principalmente geófaga (de humus), aunque no todas las especies son alimentadoras de suelo: por ejemplo, Ruptitermes arboreus del género Ruptitermes e Indotermes se alimentan de una gama más amplia de sustratos (incluida la hojarasca). Esta subfamilia construye nidos subterráneos difusos y lleva una existencia oculta, y la identificación taxonómica ha dependido durante mucho tiempo de la morfología de la válvula entérica de las obreras y de secuencias moleculares. Se reconocen con claridad tres regiones faunísticas: el reino afrotropical (África occidental, central, oriental y austral) posee el mayor número de especies, seguido del reino oriental, y el reino neotropical también cuenta con representantes. Los estudios filogenéticos y biogeográficos mitocondriales confirman que esta subfamilia es monofilética, que se originó en el reino afrotropical y que posteriormente se dispersó por separado hacia los reinos oriental y neotropical (21). Desde el punto de vista económico, se han registrado daños para el género neotropical Anoplotermes de esta subfamilia: Anoplotermes en la rizosfera del arroz de secano en Brasil fue identificado por primera vez como plaga del arroz de secano (42); Anoplotermes pacificus en Minas Gerais daña plántulas de eucalipto (43); y Aparatermes abbreviatus daña raíces de pastos y de eucalipto (44).
Crepititermitinae 响白蚁亚科
La subfamilia Crepititermitinae fue establecida por Hellemans, Engel y Bourguignon en 2024 (21), con el género tipo Crepititermes Emerson, 1925. El nombre de la subfamilia deriva del nombre del género tipo (latín crepitus, sonido crujiente). Esta lista registra 1 géneros y 1 especies.
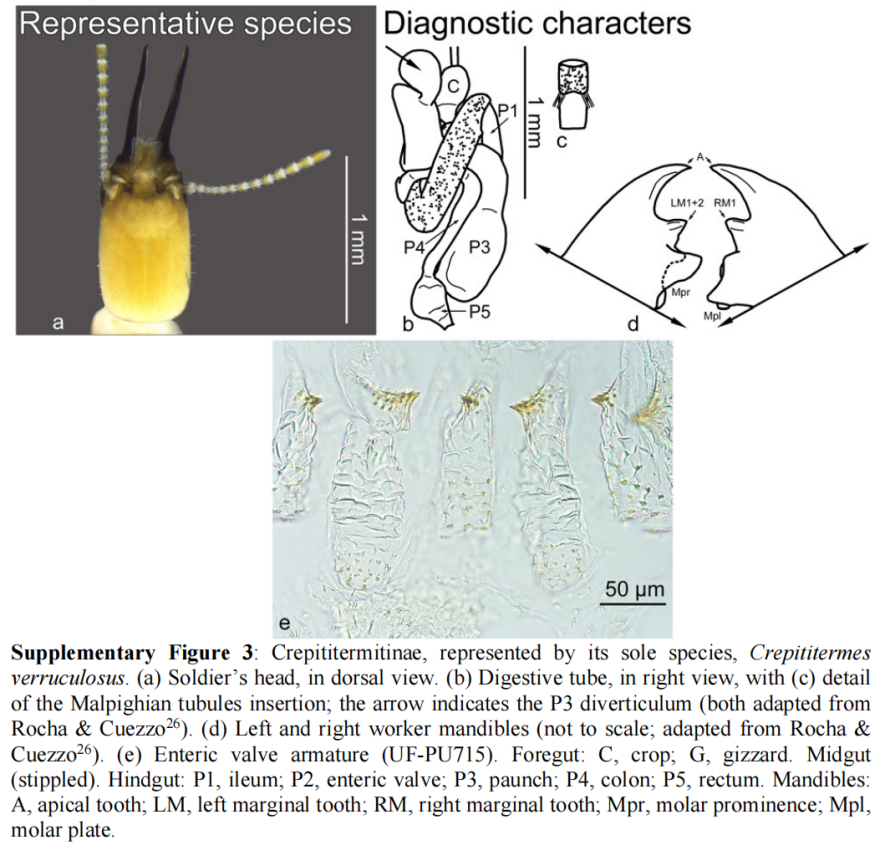
Dado que contiene solo un género y una especie, sus caracteres son los de la subfamilia. La única especie se distribuye en América del Sur: Brasil, Colombia, Guayana Francesa, Guyana, Bolivia, Ecuador, Paraguay, Perú y Trinidad y Tobago. Su dieta es el humus (suelo). La cabeza del soldado es casi rectangular con una frente plana; el labro tiene el margen apical cóncavo y ángulos laterales agudos, y las mandíbulas son mandíbulas de chasquido simétricas. Sus obreras se defienden mediante autotisis (21): cuando se las molesta, la pared corporal dorsal se rompe en la unión del tórax y el abdomen, exponiendo el contenido intestinal pegajoso para repeler a los enemigos. Caracteres como un P3 del intestino posterior con un ciego y una molleja con una banda columnar lo sitúan entre los Cubitermitinae y los grupos relacionados, lo que lo convierte en uno de los grupos de ramificación temprana representativos de las termitas superiores.
Rocha & Cuezzo (2015) (45) describieron por primera vez de manera sistemática la morfología y el enrollamiento in situ del tubo digestivo de la obrera de esta especie; el alado fue descrito previamente por Emerson (1925) a partir del holotipo de Kartabo, Guyana (el holotipo de Crepititermes verruculosus es él mismo un imago), y Roonwal & Verma (1980) (46) describieron además la microescultura fina de la superficie de sus alas. También se ha secuenciado el metagenoma intestinal de las obreras de la población de Petit Saut en la Guayana Francesa (Mikaelyan et al., 2015) (47), lo que aporta material para el estudio de los simbiontes intestinales de las termitas superiores que habitan en el suelo.
Cubitermitinae 方白蚁亚科
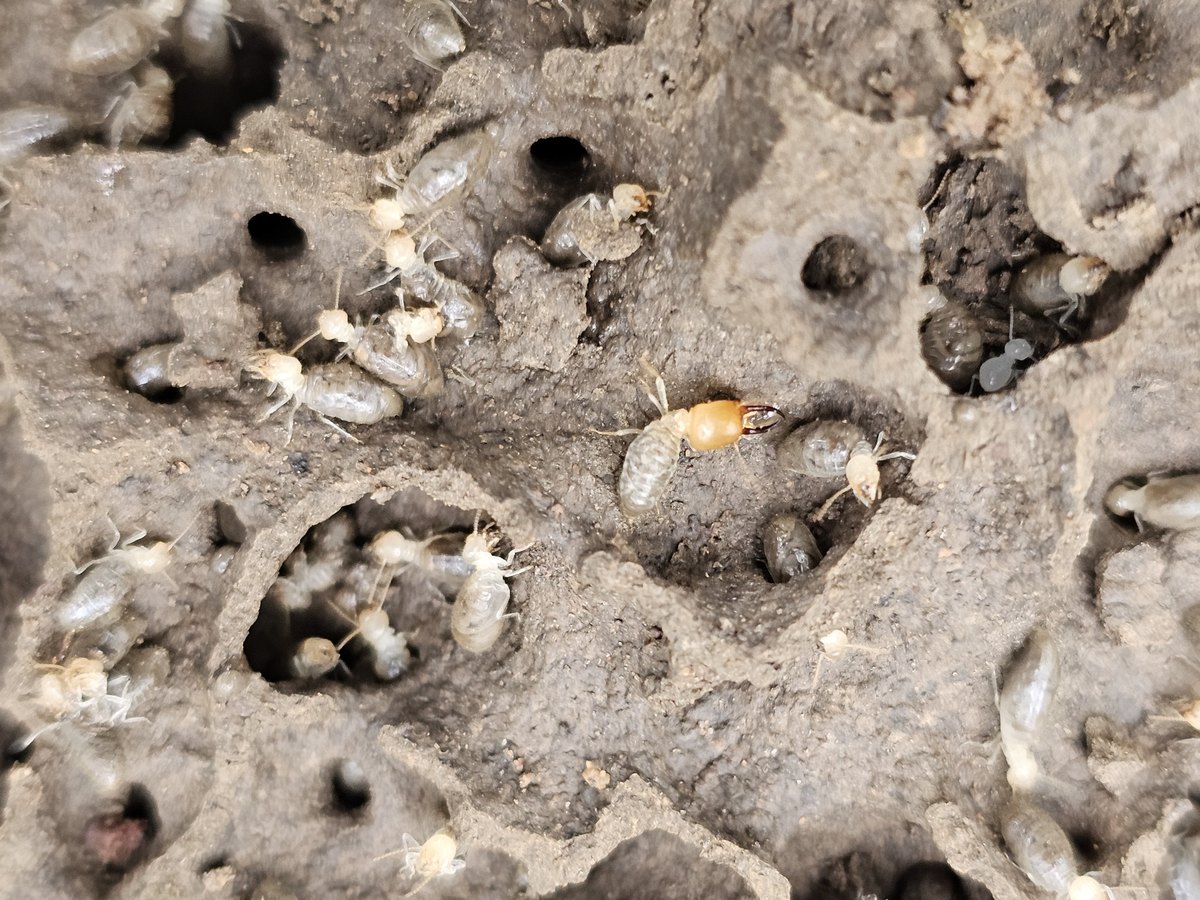
La subfamilia Cubitermitinae fue establecida por Weidner en 1956, con el género tipo Cubitermes Wasmann, 1902, del cual toma su nombre la subfamilia. Esta lista registra 28 géneros y 149 especies.
Todos los géneros y especies conocidos de esta subfamilia se distribuyen en el África subsahariana —África occidental (Côte d'Ivoire, Nigeria, Guinea, Senegal, Gambia, Togo, etc.), África central y la cuenca del Congo (Camerún, Congo, República Democrática del Congo, Gabón, República Centroafricana), África oriental (Kenia, Tanzania, Uganda, Ruanda) y África austral (Sudáfrica, Zimbabue, Zambia, Namibia, Angola, etc.)—. La dieta es principalmente suelo (humus). La construcción de nidos es su rasgo más distintivo: muchos géneros construyen montículos columnares, en forma de paraguas o de hongo sobre la superficie del suelo, y las paredes del nido se construyen con suelo y heces, lo que puede concentrar de manera notable la arcilla y los nutrientes del suelo y modificar su estructura (en los pastizales de Uganda, la densidad de montículos de Cubitermes testaceus puede superar el centenar por hectárea (48)); a menudo se los emplea como grupos bioindicadores de la salud del suelo. Los soldados tienen mandíbulas de tipo mordedor y defienden en la entrada del nido. Como representa el género tipo Cubitermes, la cabeza del soldado es casi rectangular con la fontanela en la frente, las antenas tienen unos 14–15 artejos y las mandíbulas son cortas, robustas y curvadas hacia dentro. En los géneros Procubitermes, Noditermes, Basidentitermes, Unguitermes, Unicornitermes, etc., el abdomen del soldado es de color blanco lechoso (tipo de intestino blanco), pues los soldados se alimentan únicamente de saliva de las obreras. El íleon (P1) de la obrera está inflado formando un saco, la válvula entérica posee una almohadilla media, el P3 del intestino posterior lleva un ciego ventralmente y la molleja carece de banda columnar. Desde el punto de vista taxonómico, esta subfamilia es un grupo monofilético bien sustentado; el intestino posterior de Cubitermes es un material clásico para estudiar la fermentación anaerobia y la microflora metanógena del intestino de las termitas superiores (49).
Desde el punto de vista económico, todos los miembros de esta subfamilia son grupos de alimentación de suelo, y allí donde sus montículos aparecen densamente a lo largo de los bordes de pastizales húmedos pueden ocupar y cubrir terreno (50).
Cylindrotermitinae 圆筒白蚁亚科
La subfamilia Cylindrotermitinae fue establecida por Hellemans, Engel y Bourguignon en 2024 (21), con el género tipo Cylindrotermes Holmgren, 1906; el nombre de la subfamilia deriva del género tipo y alude a la cabeza y el cuerpo alargados y cilíndricos (griego kylindros, cilindro). Este catálogo incluye 2 géneros y 9 especies.
Los dos géneros muestran una distribución disyunta transatlántica: el género Cephalotermes Silvestri es un género afrotropical, con la termita de cabeza rectangular ampliamente distribuida desde África occidental y central hasta África oriental; el género Cylindrotermes Holmgren es un género neotropical, y sus 8 especies se hallan todas en el reino neotropical. Ambos géneros son xilófagos, y las mandíbulas de las obreras son del tipo xilófago típico: Cephalotermes construye nidos en montículo con colonias grandes, y el nido suele contener una pareja de reproductores primarios y una reina con el abdomen muy hinchado; Cylindrotermes vive en madera muerta y forma colonias más pequeñas. Morfológicamente, la cabeza del soldado es larga y subrectangular, sin proyección frontal, la superficie corporal está cubierta de setas cortas y las mandíbulas son cortas y robustas, del tipo mordedor–cortante; el íleon (P1) de la obrera es un tubo largo que forma un asa ventral bajo el recto, y la válvula entérica posee seis almohadillas desiguales, por lo que estos taxones pueden distinguirse de los grupos relacionados. El diente apical de la mandíbula izquierda de la obrera es aproximadamente igual o más corto que el primer y el segundo dientes marginales, y el tercer diente marginal está bien desarrollado; en Cephalotermes la reina con el abdomen muy hinchado pierde gradualmente la capacidad de caminar a medida que la colonia madura (conocido solo a partir de colonias en montículo de Cephalotermes). La evidencia filogenómica de 2024 muestra que ambos forman un clado monofilético independiente, que representa un grupo reliquia de distribución restringida dentro de la familia, de posición no basal pero con una distribución sumamente disyunta. Desde el punto de vista económico, Cylindrotermes nordenskioeldi ha sido considerado perjudicial en cañaverales del nordeste de Brasil (51).
Engelitermitinae 恩格尔白蚁亚科
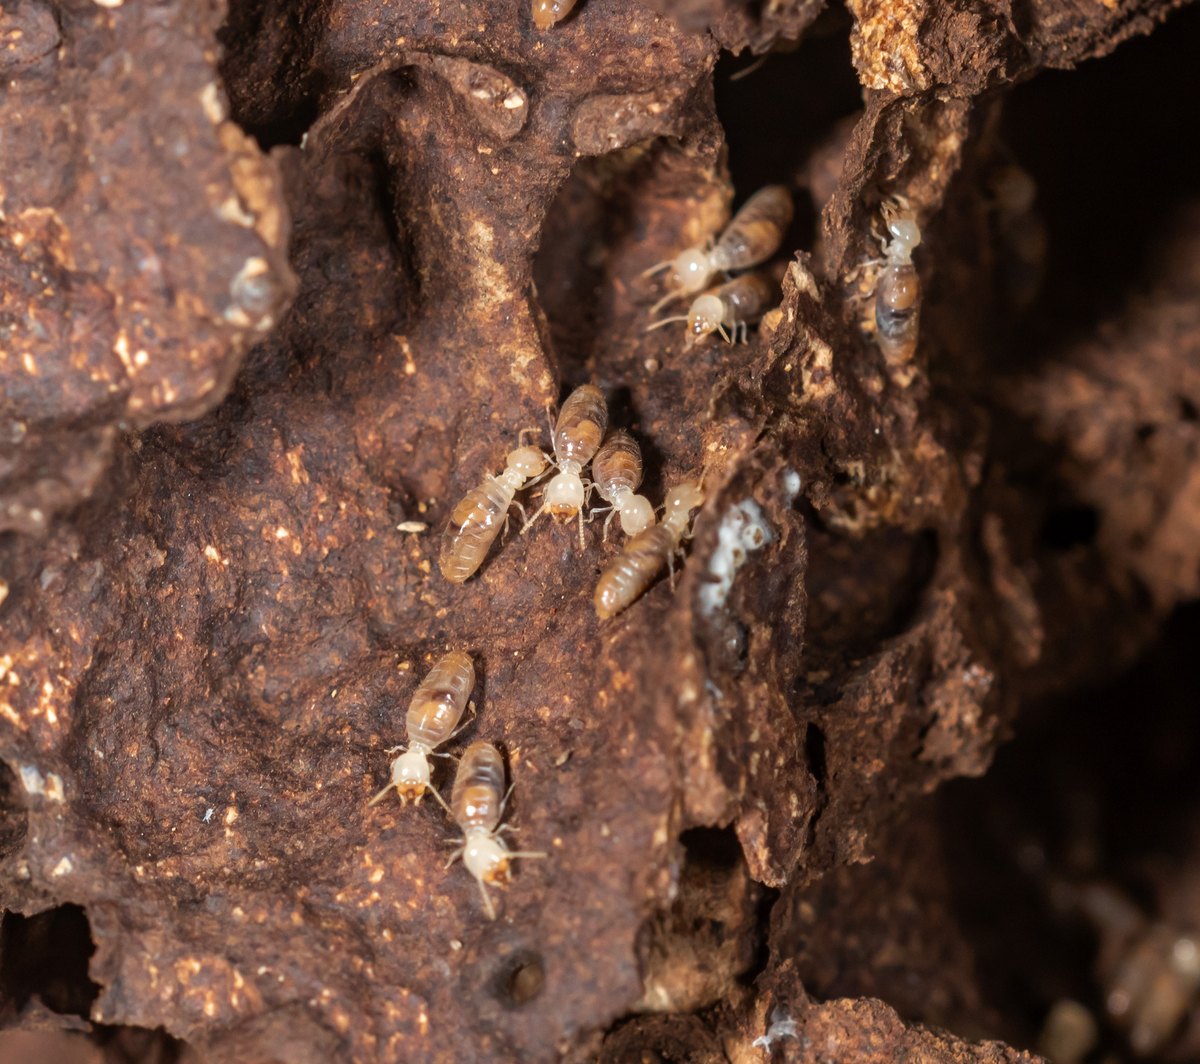
La subfamilia Engelitermitinae fue establecida por Romero-Arias, Roisin y Scheffrahn en 2024 (52), con el género tipo Engelitermes y la especie tipo E. zambo; el nombre del género honra al taxónomo de termitas Michael S. Engel. Este catálogo incluye 1 género y 1 especie.
Como contiene un solo género con una sola especie, sus caracteres son los de la subfamilia: la colonia tipo (52) fue recolectada en selva tropical de tierras bajas a lo largo del río Nyong, en el sur de Camerún, donde vivía en una cavidad de unos 50 × 60 cm entre la corteza y un árbol muerto en pie, construyendo la cámara del nido con material fecal blando y negro; la colonia contaba con más de diez mil individuos, pero los soldados eran extremadamente escasos —en dos de las cuatro muestras conocidas solo se recolectaron obreras—. Las mandíbulas de las obreras son del tipo de alimentación de suelo (alimentación de humus), y los cojinetes de la válvula entérica llevan únicamente una sola espina con cutícula no esculpida, una combinación única entre las termitas; los soldados son raros, con el abdomen transparente y sin alimento sólido, la cabeza de color amarillo-naranja y rectangular, las mandíbulas cortas y robustas, cada una con un diente triangular cerca de la base, y la fórmula de espolones tibiales 2:2:2. Los alados aún no han sido recolectados. La subfamilia se conoce solo de cuatro localidades de recolección, y su descubrimiento muestra que todavía quedan por descubrir linajes profundos y distintivos de la familia en las selvas tropicales de África.
Foraminitermitinae 孔白蚁亚科
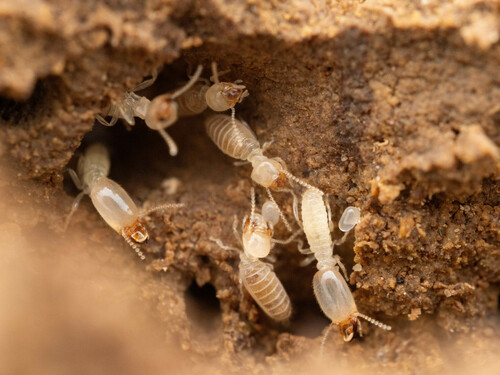
La subfamilia Foraminitermitinae fue establecida por Holmgren en 1912, con el género tipo Foraminitermes Holmgren, 1912; el nombre de la subfamilia deriva del género tipo (del latín foramen, en referencia a la estructura de la fontanela). Este catálogo incluye 3 géneros y 10 especies.
Su distribución abarca tanto el reino afrotropical (del África occidental y central hasta África oriental) como el reino oriental (la península de Malaca y el sudeste asiático). Es principalmente de alimentación de suelo (alimentación de humus), vive bajo tierra y a menudo está activa en la base de montículos antiguos de otras termitas, y es muy rara. Morfológicamente, la cabeza del soldado es casi rectangular y está ligeramente aplanada dorsoventralmente, con una fontanela distintiva, ligeramente deprimida, en la región frontal; las mandíbulas son del tipo robusto de mandíbulas grandes, suavemente curvadas y con dientes marginales claros, y se emplean para masticar más que para chasquear; las mandíbulas de las obreras son del tipo de alimentación de suelo, y la válvula entérica presenta una armadura espinosa, un carácter diagnóstico importante para distinguir esta subfamilia de sus parientes cercanos. Su posición taxonómica y evolutiva es distintiva: algunos análisis filogenéticos transcriptómicos y mitocondriales sitúan esta subfamilia entre las divergencias más basales dentro de la familia (21), donde forma una rama temprana aliada con los Sphaerotermitinae y con los Macrotermitinae cultivadores de hongos, y constituye un linaje reliquia clave, de distribución restringida, para estudiar la evolución temprana de la familia (en especial los cambios dietéticos y el origen de la microbiota simbiótica intestinal).
Forficulitermitinae 剪白蚁亚科
La subfamilia Forficulitermitinae fue establecida por Hellemans, Engel y Bourguignon en 2024 (21), con el género tipo Forficulitermes Emerson, 1960; el nombre de la subfamilia deriva del género tipo (del latín forfex, tijeras, en referencia a las mandíbulas alargadas y curvadas como pinzas). Este catálogo incluye 1 género y 1 especie.
Como contiene un solo género con una sola especie, sus caracteres son los de la subfamilia: las obreras son de alimentación de suelo (alimentación de humus); la cabeza del soldado es casi cuadrada, la fontanela se sitúa en una depresión poco profunda con, a cada lado por delante de ella, una cresta longitudinal plana que forma un surco poco profundo que corre hasta la base del clípeo, y además hay un pequeño tubérculo a cada lado entre la fontanela y la cavidad antenal; las mandíbulas son esbeltas y sin dientes, empleadas para morder más que para chasquear, y el labro presenta una proyección media y ángulos apicolaterales agudos en su margen distal. En la obrera, el segundo diente marginal de la mandíbula derecha está bien desarrollado, y los cuatro túbulos de Malpighi se abren por pares conjuntamente en la unión del segmento mixto —caracteres que distinguen esta subfamilia de los soldados del tipo chasqueador comunes en la familia y de los Termitinae—. En el análisis de 2024 su posición fue inestable en la mayoría de los análisis (21) (se trató como un taxón rebelde), pero las pruebas de topología no rechazaron la hipótesis de que está estrechamente emparentada con los Engelitermitinae; su combinación morfológica única es suficiente para establecer una subfamilia separada, que representa otro linaje reliquia monotípico de distribución restringida de la familia, no basal y de posición filogenética incierta.
Macrotermitinae 大白蚁亚科
La subfamilia Macrotermitinae fue establecida por Kemner en 1934 (53), con el género tipo Macrotermes Holmgren, 1909 (del griego makros, grande, combinado con Termes). Este catálogo incluye 12 géneros y 373 especies.
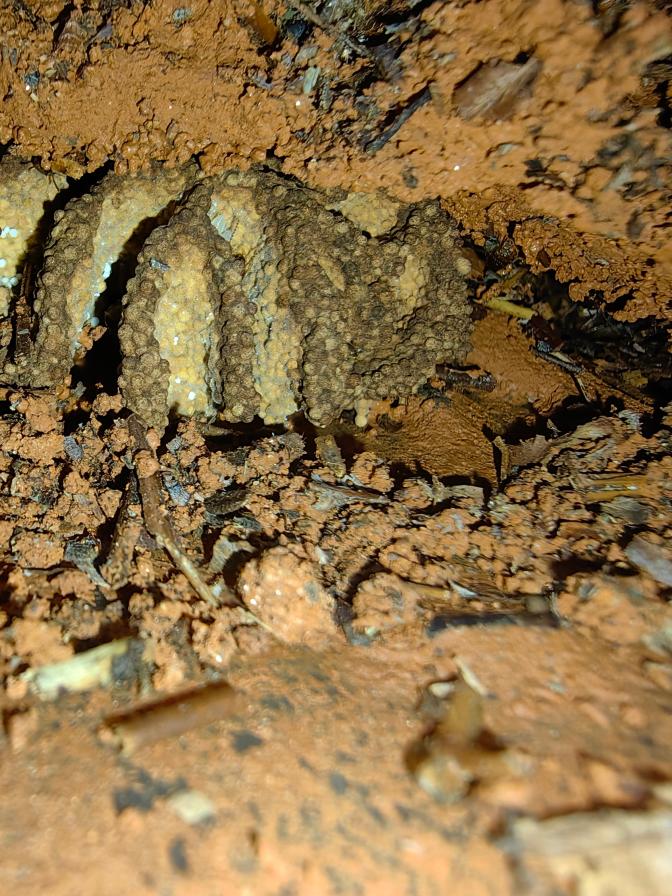
Esta subfamilia es el único grupo dentro de los Termitidae que mantiene una simbiosis obligada con el hongo basidiomiceto Termitomyces, cultivando 'panales de hongos' dentro de sus nidos, una simbiosis que se originó hace unos 30 millones de años (54). Las obreras jóvenes mezclan material vegetal triturado con esporas en el intestino, depositan la mezcla para construir el panal y se alimentan de los conidios del hongo y del panal de hongos maduro, aprovechando así restos vegetales antiguos y muy lignificados. Su distribución es tropical–subtropical del Viejo Mundo: África posee la fauna más rica, seguida del reino oriental (el sur de China tiene muchas especies endémicas), y hay unos pocos representantes en Madagascar (el género Microtermes) y en la península de Arabia (Yemen, Arabia Saudita, Omán); no hay presencia natural en los reinos neotropical ni australiano. La mayoría de las especies de esta subfamilia construyen nidos subterráneos o montículos de tierra sobre el suelo, en los que las cámaras de panales de hongos y el sistema de túneles sirven conjuntamente para la ventilación y para regular la temperatura y la humedad; los montículos de Macrotermes de la sabana africana pueden alcanzar varios metros de altura y figuran entre las estructuras de ingeniería ecosistémica más conspicuas del paisaje tropical. Los soldados de esta subfamilia tienen glándulas frontales bien desarrolladas cuyos reservorios son visibles dentro de la cápsula cefálica, una fontanela distintiva por delante y mandíbulas grandes y robustas con márgenes apicales en gancho, llevando la mandíbula izquierda habitualmente un diente (más pronunciado en el género Odontotermes, del cual deriva el nombre del género); en la reina madura el abdomen se hincha hasta formar un fisogastrio gigantesco debido a un desarrollo ovárico extremo, siendo las reinas de Macrotermes las mayores, y vive en la cámara real, donde se especializa en la puesta de huevos. Tanto los alados como las obreras presentan una banda transversal esclerotizada en la parte posterior del labro, separada en el medio por una membrana transparente, y cuatro lóbulos en la unión del intestino medio con el intestino posterior (por delante del segmento mixto), que son caracteres diagnósticos estables de esta subfamilia.
Desde el punto de vista económico, esta subfamilia es el grupo de plagas más importante de la agricultura y la silvicultura del Viejo Mundo: Macrotermes bellicosus y Macrotermes subhyalinus son las principales termitas plaga de las tierras de cultivo, las plantaciones de cacao y las plantaciones de cocotero en África, y sus grandes montículos también dificultan el cultivo y la cosecha mecanizados; en el sur de China la termita de suelo de alas negras Odontotermes formosanus es una plaga importante de los embalses y de los diques fluviales (55), capaz de causar filtraciones, tubificación, colapsos por hundimiento e incluso la ruptura del dique, y ataca a más de cien clases de plantas, entre ellas el té, los cítricos, el eucalipto y la caña de azúcar, mientras que en las zonas cañeras de Yunnan daña la caña de azúcar junto con Macrotermes barneyi, causando una reducción significativa del rendimiento (56); en la India Odontotermes obesus y Microtermes obesi atacan el trigo, el maíz, la caña de azúcar, el té y diversos otros cultivos, causando graves reducciones del rendimiento e incluso la pérdida total de la cosecha (57, 58). Por otra parte, los hongos Termitomyces cultivados por esta subfamilia son hongos comestibles famosos en Asia y África. Además, géneros como Ancistrotermes, Hypotermes, Pseudacanthotermes y Allodontermes son plagas de cultivos en África y el sur de Asia (10).
Microcerotermitinae 锯白蚁亚科
La subfamilia Microcerotermitinae fue establecida por Holmgren en 1910 (Microcerotermitinae Holmgren, 1910) (14), con el género tipo Microcerotermes Silvestri, 1901; el nombre de la subfamilia deriva del género tipo (del griego mikros, pequeño, y cero, cuerno). Está estrechamente emparentada con los Syntermitinae, pero no puede confirmarse plenamente que ambos sean grupos hermanos. Este catálogo incluye 2 géneros y 150 especies.
Esta subfamilia presenta una distribución pantropical, ampliamente extendida por el reino oriental, el África tropical y el reino australiano, entre otras grandes regiones, mientras que el género de termitas de gancho barbado se distribuye principalmente en el Cono Sur del reino neotropical. Su dieta abarca un amplio espectro de alimentación de madera y de gramíneas, y se alimenta sobre todo de madera descompuesta y de gramíneas secas en la interfaz suelo–madera; la cabeza del soldado es estrecha y alargada, sin proyección frontal, y las mandíbulas son del tipo perforante–cortante; el soldado presenta una fontanela pequeña, puntiforme o en forma de hendidura, en la parte anterior de la frente; las mandíbulas son cortas y robustas, con el margen apical curvado hacia dentro en forma de gancho, la mandíbula izquierda con un diente pequeño y la mandíbula derecha casi sin dientes, las antenas con 13–14 segmentos y la fórmula de espolones tibiales 2:2:2; las obreras son monomórficas. Los nidos son en su mayoría pequeños nidos subterráneos o superficiales, generalmente sin grandes montículos conspicuos. (3)
Desde el punto de vista económico, esta subfamilia contiene varias plagas importantes: Microcerotermes diversus es la plaga más destructiva de la madera estructural en Irán (59) (provincia de Juzestán), Irak y Omán, y es una plaga importante de la palmera datilera (Phoenix dactylifera) en Irán, Irak y Arabia Saudita; en América del Sur Microcerotermes strunckii es una plaga menor de los huertos frutales (60), y Microcerotermes arboreus es una plaga menor de la fruta de la pasión.
Mirocapritermitinae 瘤白蚁亚科
La subfamilia Mirocapritermitinae fue establecida por Kemner en 1934 (Mirocapritermitinae Kemner, 1934), con el género tipo Mirocapritermes Holmgren, 1914. Este catálogo incluye 14 géneros y 132 especies.
Esta subfamilia tiene su centro de diversidad en el reino oriental, y la mayoría de sus géneros están restringidos al reino oriental; el género Pericapritermes es el de distribución más amplia y, fuera del reino oriental, se presenta también en el África tropical, el reino australiano y el margen meridional del paleártico (Japón, Corea).
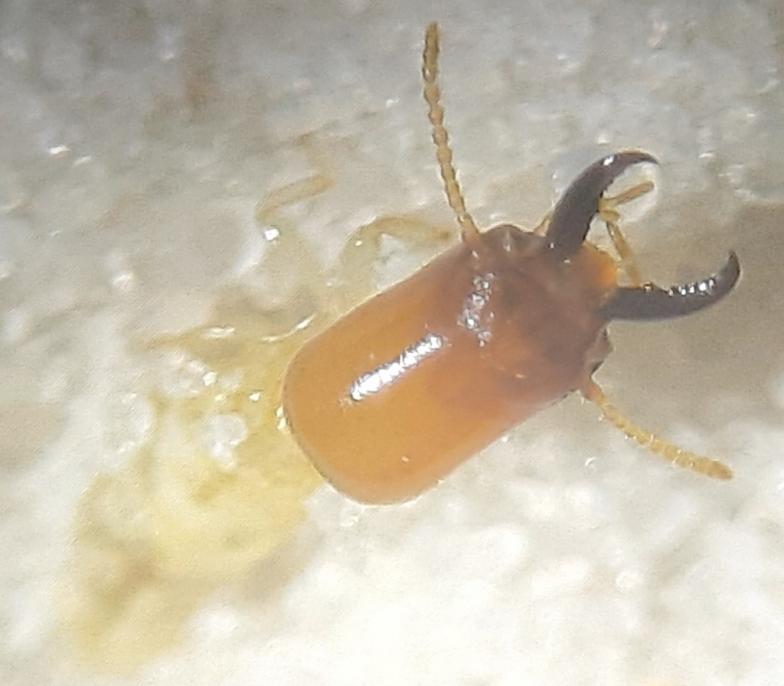
Su dieta es de alimentación de suelo (humus) o de alimentación en la interfaz suelo–madera, y pertenece al grupo típico de termitas superiores que habitan en el suelo y degradan materia orgánica. En la defensa es un grupo típico de mandíbulas asimétricas de chasquido: la cabeza del soldado es rectangular y las mandíbulas son generalmente asimétricas entre izquierda y derecha (la mandíbula izquierda está torsionada en su parte media y la derecha es de tipo cuchilla), y la energía elástica almacenada al deformarse las mandíbulas se libera para producir un chasquido a alta velocidad con fines defensivos; los estudios con fotografía de alta velocidad de Pericapritermes nitobei (61) muestran que sus mandíbulas asimétricas de chasquido superan a las de los tipos simétricos de chasquido tanto en velocidad de golpe como en fuerza, mientras que en algunas especies del género de termitas con torsión anterior las mandíbulas son casi simétricas. La cabeza del soldado generalmente carece de proyección frontal en la cara dorsal, y la fontanela es pequeña y poco conspicua, siendo el género tipo Mirocapritermes la excepción por presentar una proyección en la frente. En el morfo obrera–alado, el margen posterior del segundo diente marginal de la mandíbula derecha es cóncavo y la zona molar es lisa o solo débilmente esculpida; en el intestino posterior los dos pares de túbulos de Malpighi se fusionan proximalmente formando grupos, no hay nudo de Malpighi y la válvula entérica está compuesta por seis hileras de pliegues — caracteres diagnósticos comunes del intestino posterior de la obrera en esta subfamilia. Desde el punto de vista económico, los registros de daños son dispersos: en viveros de palma aceitera de Karnataka, India (62), Pericapritermes sp. daña las raíces de las plántulas en bolsa, causando un crecimiento raquítico de las plántulas.
Nasutitermitinae 象白蚁亚科
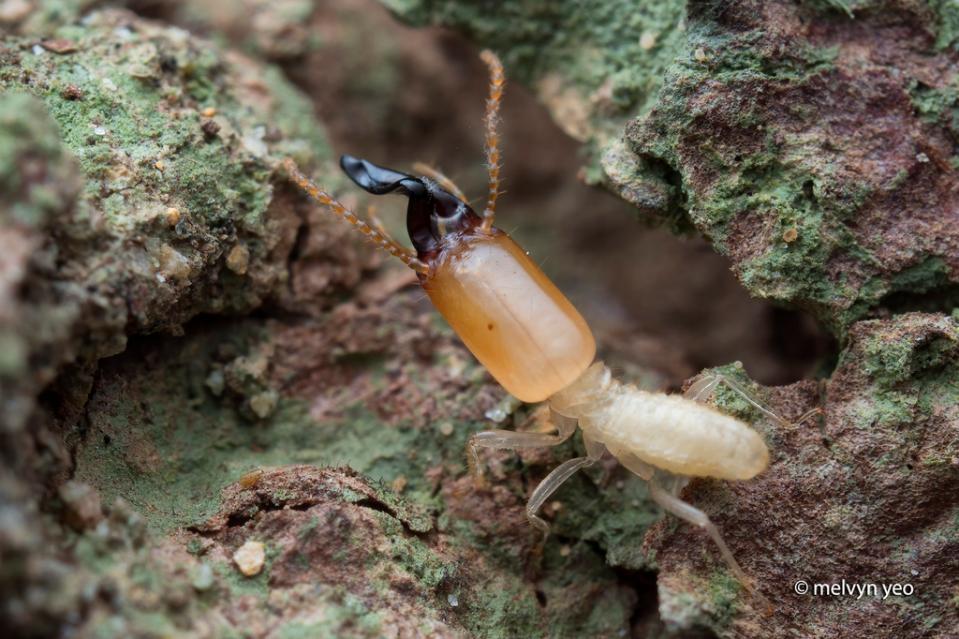
La subfamilia Nasutitermitinae fue establecida por Hare en 1937 ('Termite phylogeny as evidenced by soldier mandible development', p. 462) (63), con el género tipo Nasutitermes Dudley, 1890; el nombre de la subfamilia deriva del género tipo, siendo Nasutitermes una combinación del latín nasus (nariz) y termes, en referencia al naso cónico en el que se prolonga la parte anterior de la cabeza del soldado. Este catálogo incluye 81 géneros y 607 especies.
Esta subfamilia tiene al soldado nasuto como sinapomorfía: la parte anterior de la cápsula cefálica se prolonga en un naso cónico, a través del cual se expulsa la secreción de la glándula frontal con fines defensivos, mientras que las mandíbulas están marcadamente reducidas y ya no se emplean para morder, lo que la convierte en un linaje con una defensa altamente especializada dentro de la familia. La secreción de la glándula frontal consiste principalmente en resinas de monoterpenos, que se expulsan por el naso y se coagulan en una sustancia pegajosa al contacto con el aire, sirviendo además como feromona de alarma; su composición detallada varía entre géneros y especies, por ejemplo la secreción de Tenuirostritermes tenuirostris contiene alrededor de 62 % de pineno, 27 % de mirceno y 11 % de limoneno (64). Las obreras son monomórficas, con el posclípeo marcadamente elevado; la estructura esclerotizada de la válvula entérica varía entre géneros, y en el género Nasutitermes la válvula entérica está compuesta por tres pares de pliegues en forma de almohadilla cuya superficie está cubierta de escamas circulares. Los alados tienen ocelos distintivos y grandes ojos compuestos. La dieta incluye la alimentación xilófaga, la alimentación de hojarasca, la alimentación de humus del suelo y la alimentación de algas epífitas, entre otras; los nidos incluyen nidos de cartón arbóreos, nidos subterráneos y montículos superficiales duros. La subfamilia presenta una distribución pantropical, con la mayor diversidad en los reinos neotropical y afrotropical.
Desde el punto de vista económico, esta subfamilia es un grupo de plagas importante para las construcciones de madera tropicales y los árboles forestales de interés económico: la termita nasuta de Ceilán N. ceylonicus daña los troncos de los cocoteros en Sri Lanka (65), y N. matangensis daña la madera de los edificios residenciales tradicionales en Indonesia. Entre ellas, Nasutitermes corniger se distribuye de forma natural en México, América Central, el norte de América del Sur y las islas de las Indias Occidentales, y los registros de introducción documentan su entrada en Bahamas, Palau, Papúa Nueva Guinea y Estados Unidos; en 2001 esta especie estableció en Florida la primera población de campo no nativa de un término (Termitidae) en Estados Unidos (4, 66), con una dieta que abarca cultivos, huertos frutales, plantas de jardín y madera estructural. Sinonasutitermes y Xiaitermes dañan la madera estructural en China (67); Trinervitermes daña pastizales y plántulas de eucalipto en África e India (10, 68); Tumulitermes daña pastizales en Australia; y Hospitalitermes monoceros es una plaga importante de la caña de azúcar en India y Sri Lanka (69).
Neocapritermitinae 新扭白蚁亚科
La subfamilia Neocapritermitinae fue establecida por Hellemans, Engel y Bourguignon en 2024 (21), con el género tipo Neocapritermes Holmgren, 1912; el nombre de la subfamilia deriva del nombre del género tipo (neo-, “nuevo” + Capritermes). Este catálogo incluye 3 géneros y 20 especies.
Esta subfamilia es un grupo endémico del reino neotropical, con una distribución centrada en Brasil, que alcanza el norte hasta América Central (Panamá, Costa Rica), el sur hasta el norte de Argentina y Paraguay, el oeste hasta Perú, Ecuador, Colombia y Bolivia, y el este hasta las Guayanas, Venezuela y Trinidad y Tobago; el género Schievitermes se conoce hasta ahora por una única especie en la Guayana Francesa. No se conocen registros de introducción ni de invasión para esta subfamilia. En cuanto a los hábitos alimentarios, se alimenta de madera en descomposición o en la interfaz madera–suelo. En la defensa, los soldados tienen mandíbulas asimétricas torsionadas, cabeza rectangular y ninguna prolongación frontal; en comparación con los Mirocapritermitinae del Viejo Mundo, el margen posterior del segundo diente marginal de la mandíbula derecha es recto, la región molar presenta crestas distintivas y la válvula entérica está compuesta por tres pliegues (esta última tiene seis), caracteres por los cuales pueden distinguirse. En el tipo mandibular de obrera–alado, el diente apical de la mandíbula izquierda es más corto que la longitud combinada del primer y el segundo dientes marginales, un punto diagnóstico en la dentición de esta subfamilia; el segmento mixto del intestino posterior es largo, con la porción distal expandida en un par de ciegos mesentéricos (presentes solo en Neocapritermes y Schievitermes), y la pared de la cámara dilatada (P3) está densamente cubierta de espinas finas; los dos pares de túbulos de Malpighi se fusionan anteriormente en un solo punto, sin nodo. El registro biológico más célebre de esta subfamilia procede de Neocapritermes: las obreras viejas de N. taracua forman un saco que contiene cristales proteicos azules en la unión del tórax y el abdomen, y al defenderse de los enemigos la pared del cuerpo se rompe y el contenido se mezcla con la secreción de la glándula salival, produciendo autotisis (70), uno de los mecanismos de defensa de las obreras más complejos entre las termitas. Desde el punto de vista económico, Neocapritermes opacus es la especie de termita más común en los cañaverales del estado de São Paulo, Brasil (71).
Promirotermitinae 前奇白蚁亚科
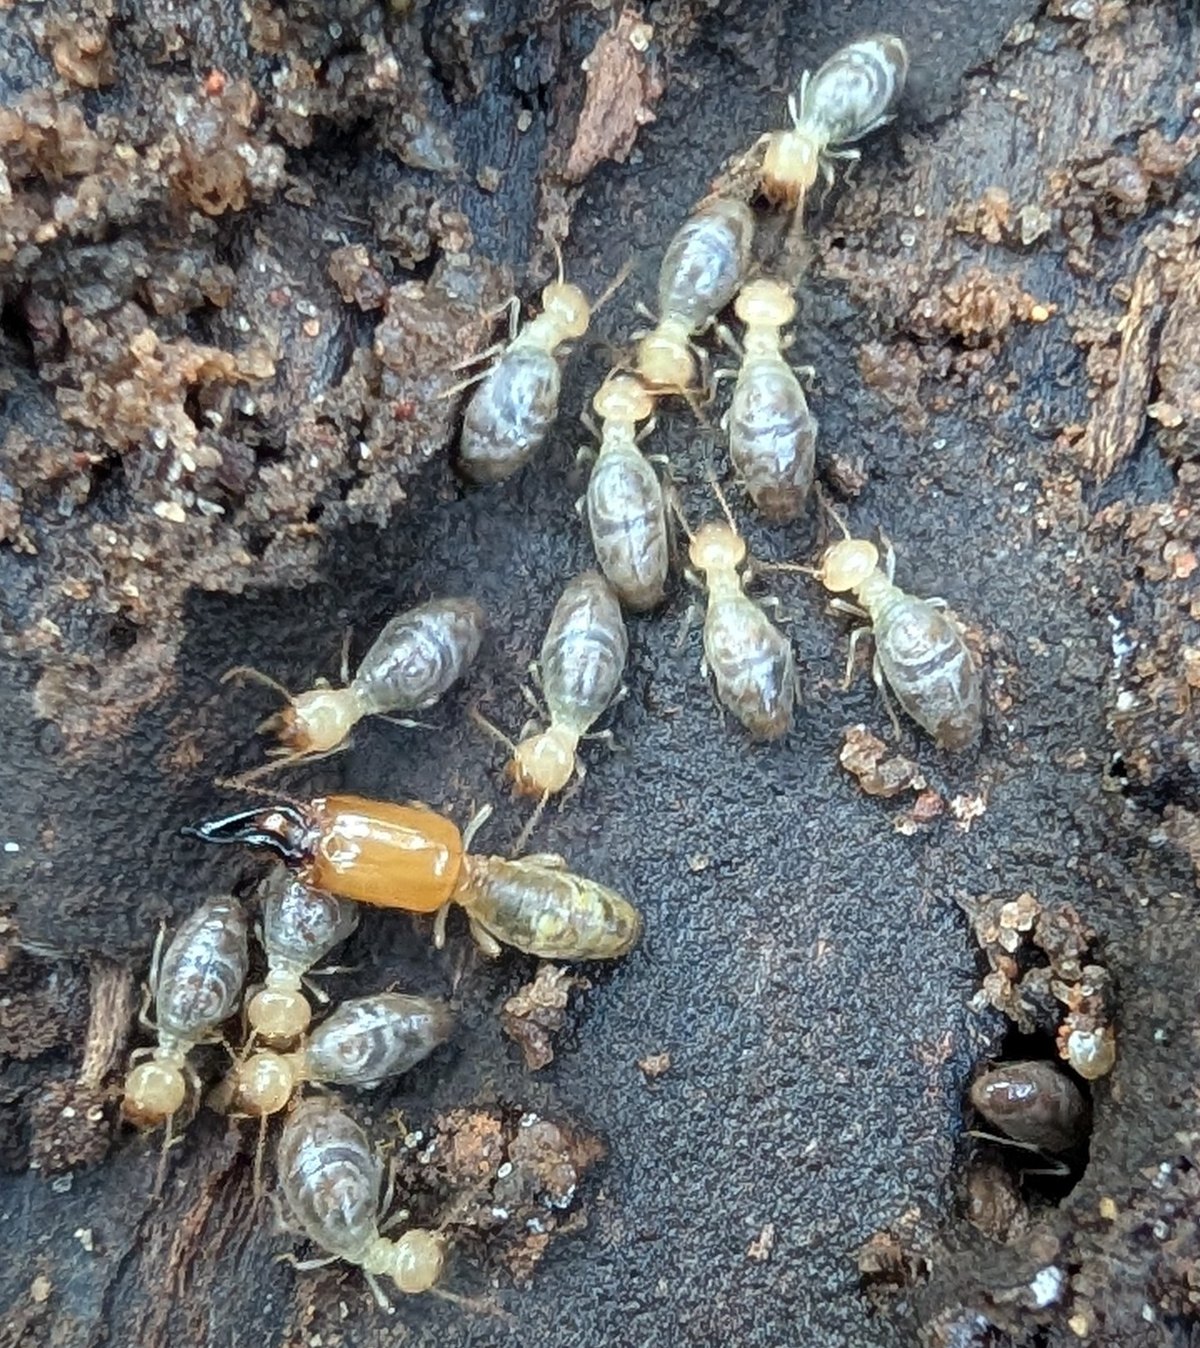
La subfamilia Promirotermitinae fue establecida por Hellemans, Engel y Bourguignon en 2024 (21), con el género tipo Promirotermes Silvestri, 1914; el nombre de la subfamilia deriva del nombre del género tipo. Este catálogo incluye 2 géneros y 39 especies.
Su dieta es de alimentación de humus (suelo); un estudio de gradiente ambiental en el Parque Nacional Kruger, Sudáfrica, asignó Promirotermes al grupo de alimentación de suelo–humus (72). Esta subfamilia está ampliamente distribuida en los reinos afrotropical y oriental, con Angulitermes extendiéndose hacia el oeste hasta Oriente Medio y constituyendo el principal elemento diversificado dentro de la subfamilia. Los soldados tienen cabeza de rectangular a ovalada, mandíbulas simétricas de chasquido y una prolongación frontal distintiva —puntiaguda en Angulitermes y en forma de montículo romo en Promirotermes—, acompañada de un labro bifurcado, siendo estas características importantes que los distinguen de los Amitermitinae similares; el íleon del intestino posterior (P1) a menudo está expandido en un saco. En el tipo mandibular de obrera–alado, el segundo diente marginal de la mandíbula derecha está bien desarrollado, lo que los distingue de los grupos relacionados en los que el segundo diente marginal de la mandíbula derecha está reducido o ausente; los dos pares de túbulos de Malpighi del intestino posterior están fusionados en una base común, un carácter diagnóstico estable del intestino posterior de la obrera.
Protohamitermitinae 始钩白蚁亚科
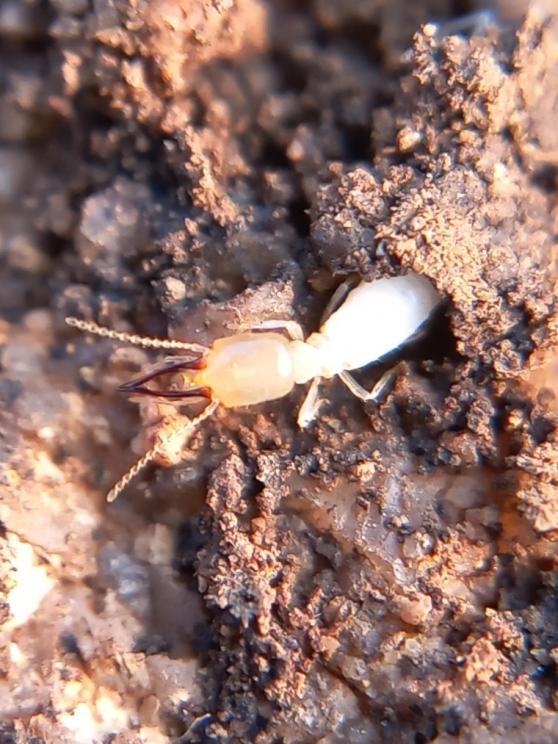
La subfamilia Protohamitermitinae fue establecida por Hellemans, Engel y Bourguignon en 2024 (21), con el género tipo Protohamitermes Holmgren, 1912; el nombre de la subfamilia deriva del nombre del género tipo (proto-, “primitivo” + Hamitermes, este último contiene el latín hamus, “gancho”). Este catálogo incluye 2 géneros y 2 especies.
Esta subfamilia es un grupo oligotípico endémico del reino oriental. Ambos géneros se presentan en el Sudeste Asiático (Brunéi, Malasia, Indonesia). Ambos géneros carecen de soldados, y las obreras se alimentan de madera en descomposición; su íleon (P1) largo y tubular está enrollado formando un anillo en la cara ventral del recto, de manera similar a Cylindrotermitinae y a parte de Apicotermitinae, y los túbulos de Malpighi del intestino posterior están insertos en el segmento mixto mediante dos pares de nudos. En la obrera, el primer y el segundo dientes marginales de la mandíbula derecha presentan cada uno un dentículo subsidiario bien desarrollado en la base, con el margen anterior del dentículo subsidiario angular y el margen posterior arqueado, el carácter diagnóstico más importante de la obrera de esta subfamilia; por ello puede distinguirse de los Cylindrotermitinae, que poseen soldados. Dado que carece de casta de soldado y está morfológicamente especializada, la posición taxonómica de esta subfamilia permaneció largo tiempo sin resolver; el análisis molecular muestra que los dos géneros forman un grupo monofilético (21). Como representante oriental de las termitas superiores sin soldados, esta subfamilia tiene cierta importancia para comprender la evolución paralela de la pérdida de la casta de soldado.
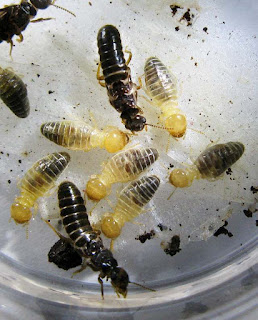
Sphaerotermitinae 圆球白蚁亚科
La subfamilia Sphaerotermitinae fue establecida por Engel y Krishna en 2004 (73), con el género tipo Sphaerotermes Holmgren, 1911; el nombre de la subfamilia deriva del nombre del género tipo (griego sphaira, “bola”); el nombre específico de su única especie, S. sphaerothorax (Sjöstedt, 1911), también hace referencia a su tórax globular. Este catálogo incluye 1 género y 1 especie.
Esta subfamilia es endémica del reino afrotropical (África occidental-central), y su única especie se distribuye por la República del Congo, Camerún, la República Centroafricana, Angola, la República Democrática del Congo, Gabón, Guinea y Nigeria, con los muestreos de campo concentrados en las selvas tropicales de tierras bajas de Camerún. Biológicamente es sumamente distintiva: la especie construye nidos en montículo epigeos, pero en lugar de cultivar los panales de hongos que se observan en Macrotermitinae, cultiva como alimento un “panal” rico en bacterias; el nido está construido con una mezcla de arcilla y arena fina y es de estructura compacta. Morfológicamente, el soldado presenta una cabeza ampliamente redondeada en ambos lados y una fontanela pequeña y poco conspicua situada en el centro de la cápsula cefálica; el labro es redondeado en los lados, con un ápice hialino en la parte anterior; la mandíbula izquierda porta varios dientes finos y un diente romo cerca de la base, mientras que el margen interno de la mandíbula derecha es liso y desdentado; el pronoto es mucho más estrecho que la cabeza, con márgenes anterior y laterales rectos y sin espinas sobresalientes. En la obrera, la placa molar de la mandíbula derecha porta 6–7 crestas, el labro está totalmente esclerotizado, sin la banda esclerotizada transversal que se observa en Macrotermitinae, y el postclípeo está fuertemente elevado con una línea longitudinal media; en la unión de su P3 (buche) y P4 (colon) hay setas conspicuas dirigidas hacia atrás, una condición única entre las termitas. En el alado, la fontanela es pálida y pequeña, como un punto. Filogenéticamente, varios análisis moleculares muestran que esta subfamilia es el grupo hermano de Macrotermitinae, que ocupa una posición clave en la diversificación temprana de las termitas superiores y que es de gran importancia para comprender la evolución de los hábitos alimentarios en las termitas superiores. Ecológicamente, sus montículos son uno de los principales recursos explotados por el comportamiento de “pesca de termitas” de los chimpancés en las selvas de Camerún (74).
Syntermitinae 聚白蚁亚科
La subfamilia Syntermitinae fue establecida por Engel y Krishna en 2004 (73), con el género tipo Syntermes Holmgren, 1909; el nombre de la subfamilia deriva del nombre del género tipo. Este catálogo incluye 22 géneros y 105 especies.
En esta subfamilia, los soldados de muchas especies poseen tanto un naso similar al de Nasutitermitinae (pero sin la capacidad de rociar) como mandíbulas masticadoras–cortantes bien desarrolladas, una morfología defensiva intermedia única dentro de la familia, mientras que las especies restantes solo tienen mandíbulas potentes y carecen de naso. Esta subfamilia es endémica del reino neotropical: su límite septentrional alcanza México (Cahuallitermes) y América Central (Costa Rica, Panamá, Guatemala, Belice, Honduras, Nicaragua), y se extiende hacia el sur hasta el norte de Argentina y Uruguay, con Brasil como centro de distribución; Bolivia, Perú, Ecuador, Colombia, Venezuela y los países del Escudo Guayanés cuentan con representantes. La mayoría de los géneros llevan una vida subterránea y muchas especies construyen montículos epigeos conspicuos, por lo que constituyen un grupo de termitas dominante en las sabanas sudamericanas; su dieta consiste principalmente en materia orgánica en la interfase suelo–madera, humus y pasto muerto. En la obrera, el segmento mixto del intestino posterior es bilobulado y se superpone por fuera al íleon (P1) (reducido a un solo lóbulo únicamente en Procornitermes), y la membrana escamosa de la pared interna de la válvula entérica porta espinas (reducida solo en Syntermes). El soldado posee un naso bien desarrollado con ápice truncado, un poro frontal amplio y distintivo, y un labro estrecho y simple con un ápice hialino. El alado presenta una fontanela grande y redonda, ligeramente cóncava o en forma de placa convexa, un postclípeo de moderada a fuertemente elevado con una línea longitudinal media, una vena costal corta en el ala anterior (R1) y tarsos sin arolio. (3)
Desde el punto de vista económico, esta subfamilia es un grupo importante de plagas subterráneas de la agricultura y la silvicultura en Brasil: S. molestus daña plántulas de piña, algodón, arroz, maíz y de plantaciones de eucalipto, y existe un primer registro de daños graves en raíces de papa (75); Cornitermes cumulans es el famoso “cupim-de-montículo” de los pastizales sudamericanos, que aparece densamente en pastizales, bordes de caminos y eucaliptales, y causa daños en el tallo de plantaciones de teca (Tectona grandis) en el estado de Mato Grosso, Brasil (76); Procornitermes cuenta con registros de presencia en campos de maíz en Argentina. Procornitermes y Labiotermes dañan el arroz de secano y el maíz en Brasil (42).
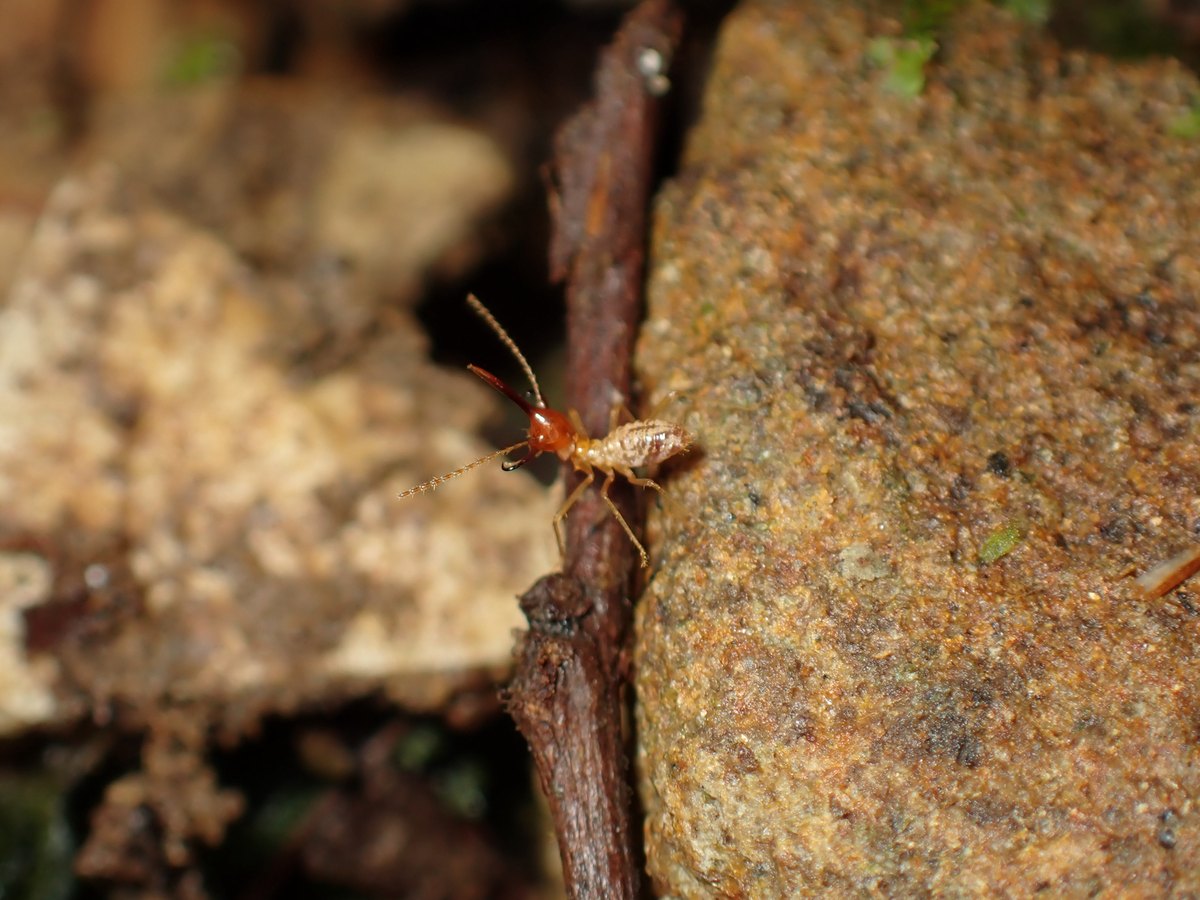
Termitinae 白蚁亚科
La subfamilia Termitinae fue establecida por Latreille en 1802, al mismo tiempo que la familia Termitidae, con el género tipo Termes Linnaeus, 1758. Este catálogo incluye 23 géneros y 106 especies.
En esta subfamilia, los soldados de la mayoría de las especies son del tipo masticador: las mandíbulas del soldado son alargadas, con pocos dientes pero grandes, y la defensa se lleva a cabo mordiendo y cortando; entre ellos, Capritermes y otros presentan mandíbulas izquierda y derecha asimétricas, que emplean un mecanismo de “chasquido” para golpear a los intrusos a gran velocidad; existen también tipos con mandíbulas de chasquido simétricas, como la termita de pinza Termes marjoriae. La distribución se resume en cuatro grandes regiones faunísticas: el reino australiano constituye una región de distribución principal, con más de diez géneros que se presentan principalmente en Australia (algunos se extienden hasta Papúa Nueva Guinea y las islas Salomón); el reino neotropical es otra región de distribución principal, con un amplio rango desde México hasta América del Sur; también hay representantes en el reino afrotropical; en el reino oriental solo existen unas pocas especies de Termes (Malasia, Indonesia, Tailandia, Vietnam, Singapur, y Guangdong y Jinghong en Yunnan, China). La dieta es principalmente xilófaga y de alimentación de suelo-humus; el género Inquilinitermes es un grupo inquilino, que habita en los nidos de otros géneros de termitas. En la obrera, el diente apical de la mandíbula es más largo o ligeramente más corto que la longitud combinada del primer y del segundo diente marginal, y el segundo diente marginal de la mandíbula derecha está reducido o ausente, con un margen posterior recto; los dos pares de túbulos de Malpighi se unen en un nodo común adherido al segmento mixto, y la válvula entérica (P2) se sitúa en el lado izquierdo del abdomen (solo Cornicapritermes constituye una excepción, con el íleon enrollado en anillo en el lado ventral y la válvula entérica en el lado derecho). El soldado tiene una cabeza casi rectangular, y el proceso frontal varía en tamaño entre géneros. (3)
Desde el punto de vista económico, en un estudio de pastizales de Paraguay, los montículos de Termes sp. redujeron el área efectiva utilizable del pastizal (77). Termes hispaniolae cuenta con un registro de introducción en las Bahamas.