Coptotermes formosanus 台湾乳白蚁
- Localidad tipo
- Taiwan: Taipei
- Distribución (según la fuente)
- southern China and Taiwan, native, widely distributed in the tropics and subtropics through the timber trade
Listado: Español (página del género) · 中文 · English
Resumen
Coptotermes formosanus es una especie del género Coptotermes, en la familia HETEROTERMITIDAE. La especie fue descrita por Shiraki en 1909; la localidad tipo es Taiwan: Taipei. Distribución según la fuente: southern China and Taiwan, native, widely distributed in the tropics and subtropics through the timber trade. Este sitio registra 17 sinónimos junior para la especie.
Etimología
Nombre del género Coptotermes: Del griego koptein (cortar) + latín termes.
Epíteto específico formosanus: En honor de Formosa (nombre antiguo de Taiwán)
Posición taxonómica
- Familia: HETEROTERMITIDAE — 3 géneros, 229 especies
- Género: Coptotermes — 58 especies
- Especie tipo del género: Coptotermes gestroi
Distribución
- Registros de distribución (según la fuente): southern China and Taiwan, native, widely distributed in the tropics and subtropics through the timber trade
El registro anterior sigue la redacción de los datos originales; no se han aplicado geocodificación ni nombres de lugar normalizados.
Sinónimos junior
Este sitio registra 17 sinónimos junior para la especie, ordenados según sus fuentes bibliográficas originales:
- Coptotermes formosae Holmgren, 1911: 192 — type locality: Taiwan: ?
- Coptotermes hongkonensis Oshima, 1914: 7-10 — type locality: China: Hong Kong
- Coptotermes intrudens Oshima, 1920: 262-264 — type locality: United States: Hawaii: Honolulu, Oahu
- Coptotermes remotus Silvestri, 1927: 93-95 — type locality: South Africa: Cape Province: Simonstown
- Coptotermes eucalyptus Ping, 1984: 186-187, 189 — type locality: China: Guangdong Province: Xiaoliang of Dianbai County
- Coptotermes xiaoliangensis Ping, 1984: 184-185, 188 — type locality: China: Guangdong Province: Xiaoliang of Dianbai County
- Coptotermes guangzhouensis Ping, 1985: 317-318, 326-327 — type locality: China: Guangdong Province: Guangzhou
- Coptotermes heteromorphus Ping, 1985: 320-321, 327 — type locality: China: Guangdong Province: Guangzhou
- Coptotermes (Polycrinitermes) changtaiensis Xia & He, 1986: 164-165, 178 — type locality: China: Fujian Province: Changtai County
- Coptotermes (Polycrinitermes) hekouensis Xia & He, 1986: 162-164, 178 — type locality: China: Yunnan Province: Hekou County
- Coptotermes (Polycrinitermes) suzhouensis Xia & He, 1986: 167-169, 180 — type locality: China: Jiangsu Province: Suzhou County
- Coptotermes (Polycrinitermes) communis Xia & He, 1986: 166-167, 179 — type locality: China: Zhejiang Province: Jinhua County
- Coptotermes rectangularis Ping & Zhu in Ping et al., 1986: 157-158, 160 — type locality: China: Guizhou Province: Conjiang County
- Coptotermes setosus Li, 1986: 227-228, 229 — type locality: China: Guangdong Province: Xuwen
- Coptotermes xianrendongensis Ping & Xu, 1993: 432-433, 442 — type locality: China: Guangdong Province: Shixing County: Xianrendong of Chebaling
- Coptotermes (Polycrinitermes) anglefontanalis Gao, Lau & He, 1995: 1-5 — type locality: China: Hong Kong: New Territories: Lui Kung Tin
- Coptotermes guizhouensis He & Qui, 1992 — type locality: China: Guizhou Province: Conjiang County
En la literatura antigua, los listados regionales y las búsquedas en bases de datos, esta especie puede aparecer bajo los sinónimos anteriores (Coptotermes formosae, Coptotermes hongkonensis, Coptotermes intrudens, Coptotermes remotus, Coptotermes eucalyptus, Coptotermes xiaoliangensis, Coptotermes guangzhouensis, Coptotermes heteromorphus); este sitio los reúne todos bajo Coptotermes formosanus.
Registrado en Fauna Sinica
Los datos morfológicos y biológicos siguientes proceden de Fauna Sinica y de la literatura relacionada; aquí solo se han normalizado la estructura y la puntuación.
Morfología
Soldado
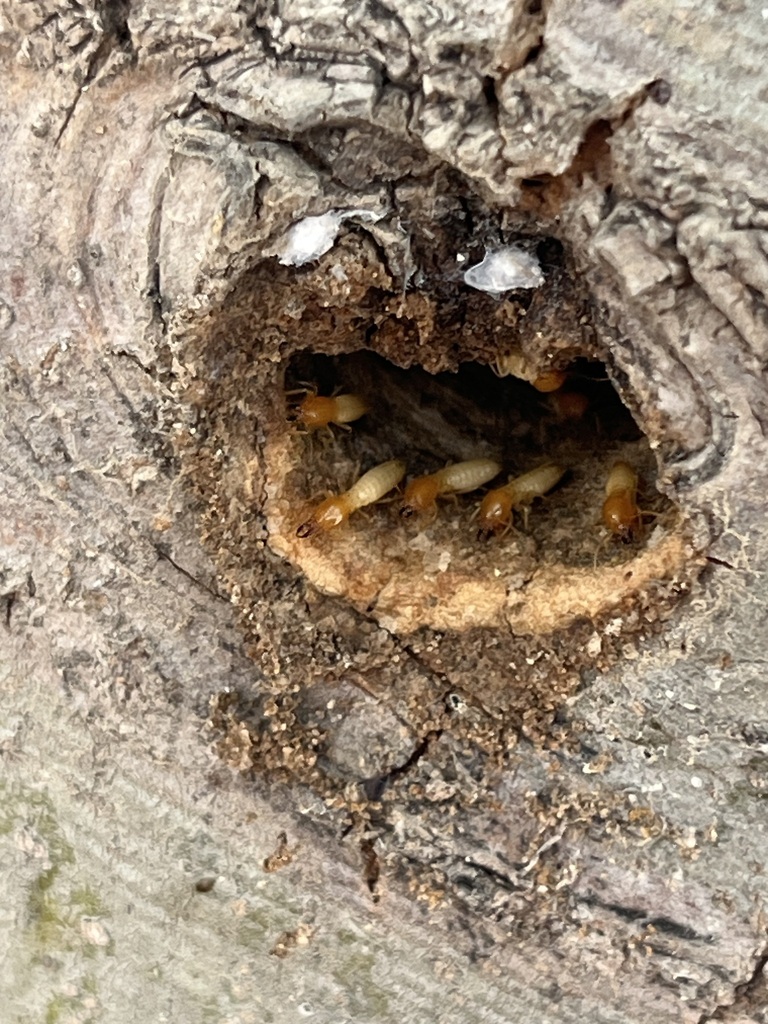
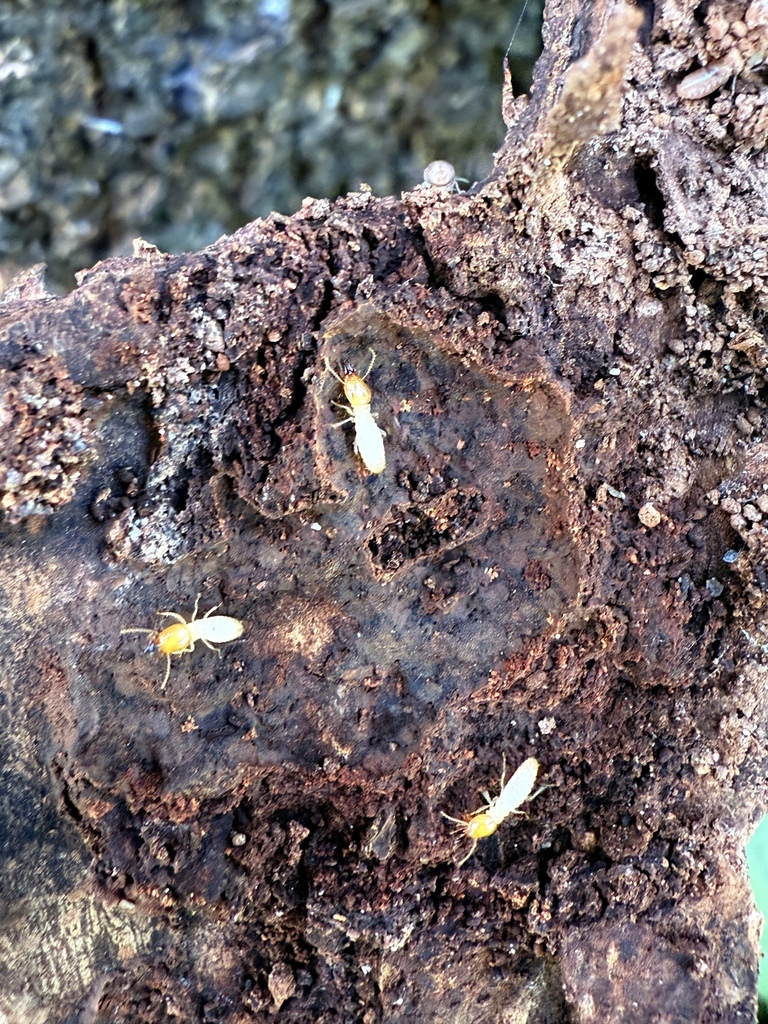
El soldado tiene la cabeza y las antenas de color amarillo pálido, las mandíbulas marrón negruzco y el abdomen blanco lechoso. La anchura de la cabeza varía notablemente con la edad del nido: en los individuos de nidos jóvenes de menos de dos años y medio la anchura de la cabeza suele ser inferior a 0,99 mm; tras la maduración de la colonia el cuerpo se agranda gradualmente, y en colonias con 20 años de desarrollo la anchura de la cabeza puede alcanzar de 1,16 a 1,25 mm, de modo que las colonias maduras pueden ser más de un cuarto más anchas que las jóvenes; además, el pronoto y el número de segmentos antenales también aumentan con el desarrollo de la colonia.
Alado
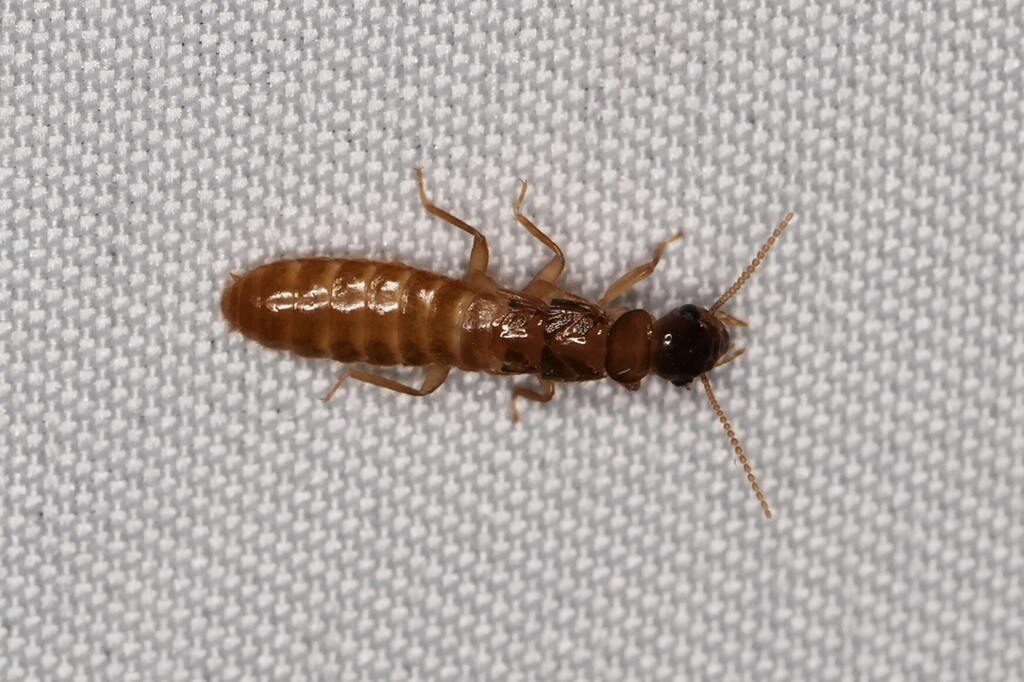
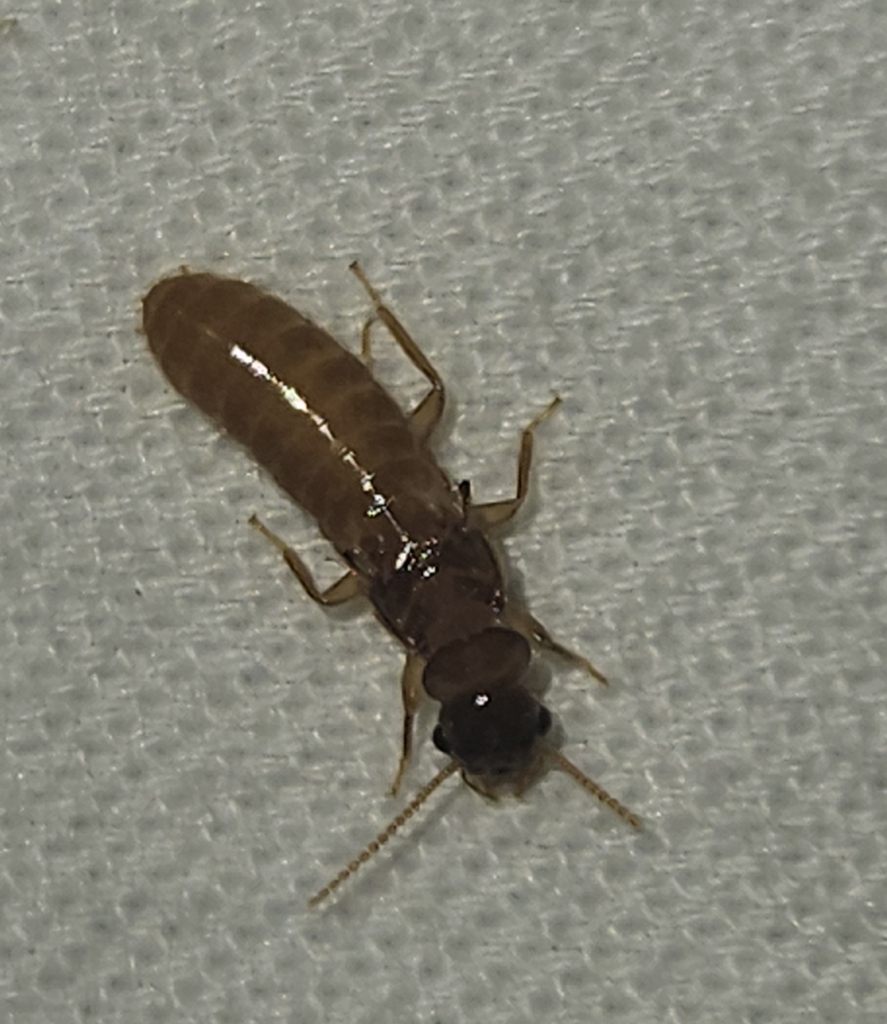
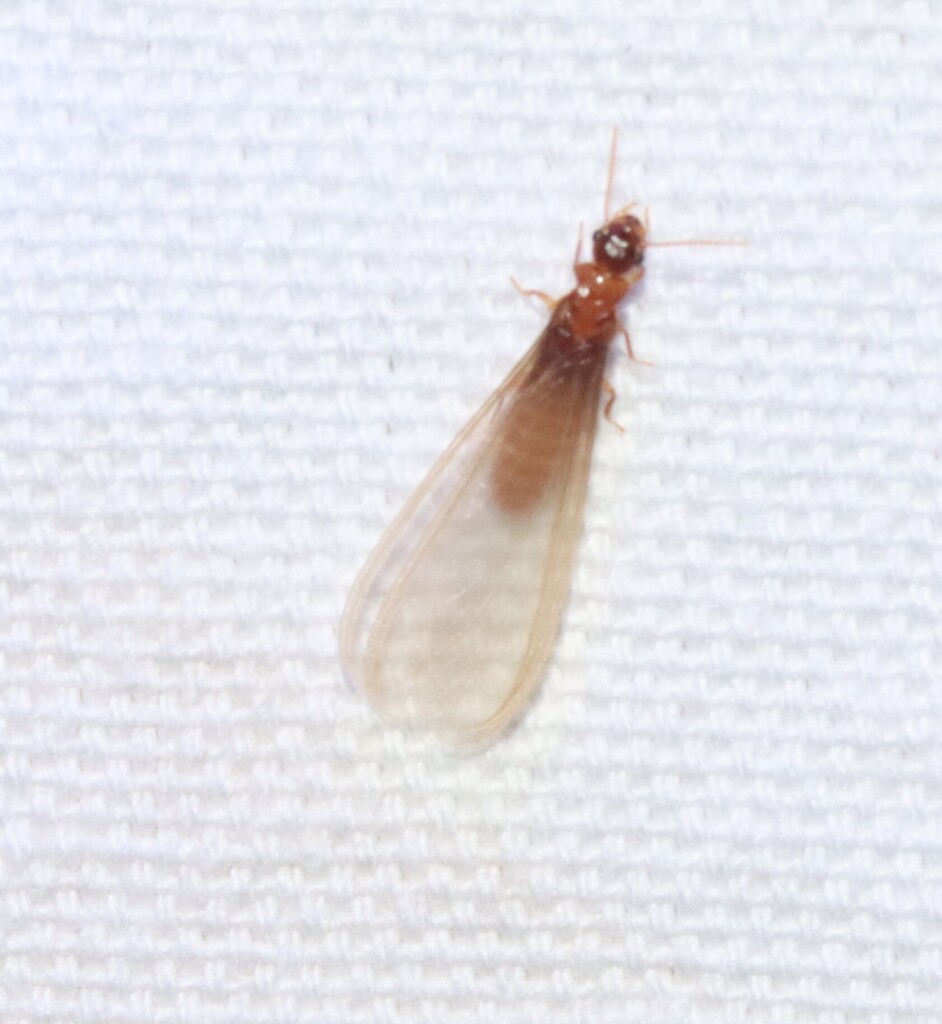
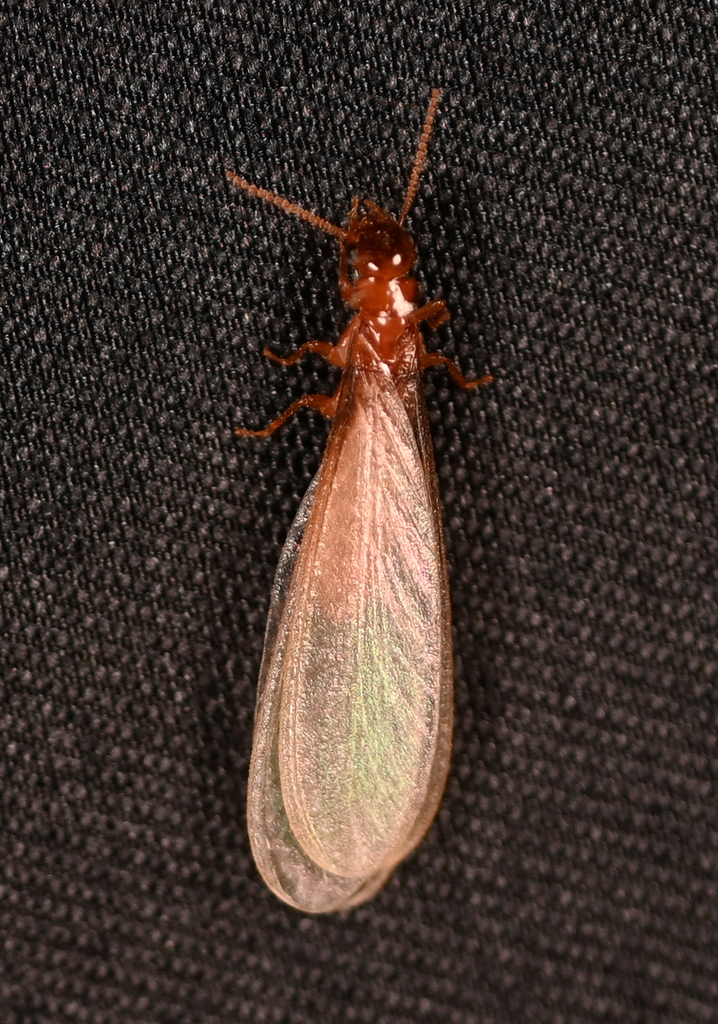
El alado tiene el dorso de la cabeza de color marrón amarillento oscuro; el dorso del tórax y del abdomen es marrón amarillento, más claro que la cabeza; el vientre del abdomen es amarillo y las alas tienen un ligero tinte amarillo pálido. Los ojos compuestos son casi circulares y los ocelos ovalados alargados, y la distancia entre el ocelo y el ojo compuesto es menor que la anchura del propio ocelo. El postclípeo es sumamente corto, a modo de una franja transversal, de color amarillo pálido y ligeramente elevado, y su longitud es aproximadamente de un cuarto a un tercio de su anchura; el anteclípeo es blanco y más largo que el postclípeo; el labro es amarillo pálido, con el extremo anterior redondeado. Las antenas tienen de diecinueve a veintiún segmentos, y en la mayoría el segmento 3 o el 4 es más corto. La cabeza es ovalada, con la parte más ancha detrás de la sección media, y ambos extremos, anterior y posterior, más estrechos que la sección media; la fontanela es ovalada, estrecha arriba y ancha abajo, grande y conspicua, y se sitúa sobre un tubo corto ligeramente prominente en el extremo anterior de la cabeza, orientada hacia delante. Las mandíbulas son falciformes, con la parte anterior curvada hacia la línea media; la mandíbula izquierda tiene en su base una escotadura profunda y, por delante de ella, otros cuatro pequeños salientes que disminuyen de tamaño hacia delante, el más anterior situado detrás del punto medio de la mandíbula, y el resto de la superficie mandibular es lisa y sin dientes. El labro es casi lingüiforme, con una punta transparente poco evidente en el extremo anterior, que alcanza la mitad de la longitud de las mandíbulas cerradas. El pronoto es plano, más estrecho que la cabeza, y presenta una escotadura en el centro tanto del margen anterior como del posterior. La escama alar anterior es mayor que la posterior, y la superficie alar está densamente cubierta de setas cortas y finas; en el ala anterior la media surge independiente en la sutura escapular, más cerca de la cubital que de la radial sector, y la cubital tiene de seis a ocho ramas; en el ala posterior la media se separa de la base de la radial sector y, tras separarse, queda más cerca de la cubital que de la radial sector, y la cubital tiene siete u ocho ramas.
Obrera
Ninfa
Biología
Distribución y localidad
En China se distribuye por el este del país; su límite septentrional se sitúa aproximadamente al sur del río Huai, en las localidades al sur de la línea formada por Hefei, Chaoxian y Wuhu, en Anhui, y Jianhu, en Jiangsu, alrededor de los 32 a 39 grados de latitud norte; fuera del país se encuentra en Japón, Filipinas, los estados del sur de Estados Unidos, Hawái y África.
Notas taxonómicas
Fuente: Huang Fusheng et al. (2000), Fauna Sinica, Insecta vol. 17, Isoptera, Science Press. (entrada n.º 83 del libro original) Las entradas se citan por su número en la obra original.
Fotos 120 fotos
Fotos con licencia libre; haga clic para ampliar. Enlazadas desde iNaturalist / Wikimedia Commons; los derechos son de sus autores — bajo cada foto se indican autor, licencia y página original. Aquí se muestran solo las primeras 6; el resto está en «Todas las fotos», al final de la página.
Mapa de distribución
Agregado de registros de GBIF en una rejilla de 1°; solo se usan taxones actuales de esta lista, por lo que los registros fósiles quedan excluidos. El tamaño y la intensidad del punto indican el número de registros de la celda.
Artículos relacionados
Artículos en caché de este género (coincidencia automática, a título orientativo); para buscar esta especie con sus sinónimos junior incluidos, use el buscador de literatura.
- Phylogeography of Coptotermes gestroi and Coptotermes formosanus (Isoptera: Rhinotermitidae) in Taiwan
Resumen
Abstract The Formosan subterranean termite, Coptotermes formosanus Shiraki (Isoptera: Rhinotermitidae), is primarily reported from subtropical and warm temperate regions, whereas Coptotermes gestroi (Wasmann) is reported from many areas of the tropics. Taiwan is one of a few areas where the distributions of the two species overlap. By analyzing partial mitochondrial sequences of COII, 12S rRNA, and 16S rRNA, we found that most Taiwanese C. formosanus populations were closely related to Japanese and some Chinese populations and that Taiwanese C. gestroi populations were most closely related to those from the Philippines and Hawaii rather than populations from Thailand, Malaysia, Singapore, and Indonesia. The intraspecific variation of C. formosanus was 0.7–0.8% for three genes among seven Taiwanese populations, whereas all Taiwanese C. gestroi populations had identical sequences. The results support that Taiwan may be a center of origin for C. formosanus, but a recent introduction site for C. gestroi.
- Genetic Relationship Between Coptotermes gestroi and Coptotermes vastator (Isoptera: Rhinotermitidae)
Resumen
The phylogenetic relationship of Coptotermes gestroi (Wasmann) and Coptotermes vastator Light (Isoptera: Rhinotermitidae) was determined using DNA sequence comparisons of mitochondrial genes. Partial sequences of the ribosomal RNA small subunit 12S, ribosomal RNA large subunit 16S, and mitochondrial COII were obtained from nine populations of C. gestroi from South East Asia (Malaysia, Singapore, Thailand, and Indonesia) and four populations of C. vastator from the Philippines and Hawaii. In addition, four populations of Coptotermes formosanus Shiraki and Globitermes sulphureus (Haviland) were used as the outgroups. Consensus sequences were obtained and aligned. C. vastator and C. gestroi are synonymous, based on high sequence homology across the 12S, 16S, and COII genes. The interspecific pairwise sequence divergence, based on Kimura 2-parameter model between C. gestroi and C. vastator, varied only up to 0.80%. Morphometric measurements of 16 characteristics revealed numerous overlaps between the examined individuals of both species. Based on the molecular phylogenetics and morphometric data, it is proposed that C. vastator is a junior synonym of C. gestroi.
- Tunneling activity, wood consumption and survivorship of Coptotermes gestroi, Coptotermes curvignathus and Coptotermes kalshoveni (Isoptera: Rhinotermitidae) in the laboratory
Resumen
The tunneling activity, wood consumption and survivorship of three species of subterranean termites, Coptotermes gestroi (Wasmann), C. curvignathus Holmgren and C. kalshoveni Kemner were compared in the laboratory using two methods: petri dish and glass jar methods. The petri dish method consisted of a 15-cm petri dish containing 5% agar and 4 rubber wood blocks placed at positions of 0, 90, 180 and 270°. The second method consisted of a glass jar containing 200 g sand moistened with 40 ml distilled water and a piece each of rubber and pine wood on the top of the sand surface. Termites were released into the dish and jar, and allowed to tunnel freely for 28 days. At the end of the experiment, the tunneling activity was semi-quantitatively ranked, the set-up was dissembled, and termite survivorship and wood consumption rate were determined. Results suggested that C. curvignathus has the most active tunneling activity, followed by C. gestroi. On the other hand, C. kalshoveni has the least tunneling activity, but highest wood consumption rate, possibly showing a higher resource fidelity. The survivorship of the termites was >75% after the 28-day experimental period.
Artículos sobre esta especie, sinónimos incluidos → OpenAlex Google Scholar CNKI
Los resúmenes proceden de metadatos abiertos; los derechos pertenecen a sus autores/editores. Solo para referencia; consulte el original.
Notas bibliográficas
Notas editadas a partir de la bibliografía original, no transcripciones. Las marcas de cada párrafo remiten a los registros archivados en .sources; las citas completas figuran al final.
Densidad de cebos y costo en el control de área
Según el resumen, Lin et al. (2026) llevaron a cabo un programa de cebos de dos años en el Parque Científico de Taiwán Central (466 ha) y el Parque Científico de Hsinchu (777 ha), monitorearon mensualmente la actividad de las colonias de Coptotermes formosanus con una matriz de estacas de madera espaciadas 5 m y cebaron cada colonia con una sola estación subterránea; se eliminaron 11 colonias, con un tiempo medio de eliminación de 1.82 ± 1.25 meses y un consumo de cebo de 164.3 ± 68.6 g (aproximadamente un tubo de cebo) por colonia; la simulación de espaciamientos de estaciones de 6 a 16 m mostró que las colonias podían eliminarse con espaciamientos de ≤8 m en el parque de Taiwán Central y de ≤12 m en Hsinchu, con costos anuales mínimos de unos 13.59 y 14.83 millones de NTD, respectivamente.
Referencias
Otras especies de Coptotermes (57 especies)
- Coptotermes acinaciformis
- Coptotermes amanii
- Coptotermes amboinensis
- Coptotermes bannaensis
- Coptotermes beckeri
- Coptotermes bentongensis
- Coptotermes boetonensis
- Coptotermes brunneus
- Coptotermes ceylonicus
- Coptotermes chaoxianensis
- Coptotermes cooloola
- Coptotermes curvignathus
- Coptotermes cyclocoryphus
- Coptotermes dimorphus
- Coptotermes dobonicus
- Coptotermes dreghorni
- Coptotermes elisae
- Coptotermes emersoni
- Coptotermes frenchi
- Coptotermes fumipennis
- Coptotermes gambrinus
- Coptotermes gaurii
- Coptotermes gestroi
- Coptotermes grandiceps
- Coptotermes grandis
- Coptotermes guangdongensis
- Coptotermes gulangyuensis
- Coptotermes hainanensis
- Coptotermes intermedius
- Coptotermes kalshoveni
- Coptotermes kishori
- Coptotermes lacteus
- Coptotermes longignathus
- Coptotermes longistriatus
- Coptotermes mauricianus
- Coptotermes melanoistriatus
- Coptotermes menadoae
- Coptotermes michaelseni
- Coptotermes minutissimus
- Coptotermes monosetosus
57 especies en este género. Ver todas las especies en la página del género →
Citar esta especie
Las citas se generan a partir de los campos de esta página; conserve el DOI y el número de versión al citar.
GB/T 7714
班奈特格林. Lista de nombres latinos y chinos de los Isoptera (termitas) actuales: Coptotermes formosanus 台湾乳白蚁[EB/OL]. Versión 2026.10.30. https://termite-extant-isoptera.org/es/species/coptotermes-formosanus/. DOI: 10.5281/zenodo.23646836.
BibTeX
@misc{isoptera_coptotermes_formosanus_2026,
  author       = {班奈特格林},
  title        = {Coptotermes formosanus: lista de Isoptera (termitas) actuales},
  year         = {2026},
  version      = {2026.10.30},
  howpublished = {https://termite-extant-isoptera.org/es/species/coptotermes-formosanus/},
  note         = {HETEROTERMITIDAE; versión 2026.10.30; DOI: 10.5281/zenodo.23646836},
  doi          = {10.5281/zenodo.23646836}
}
RIS
TY  - ELEC
TI  - Coptotermes formosanus: lista de Isoptera (termitas) actuales
AU  - 班奈特格林
PY  - 2026
UR  - https://termite-extant-isoptera.org/es/species/coptotermes-formosanus/
DO  - 10.5281/zenodo.23646836
ER  -